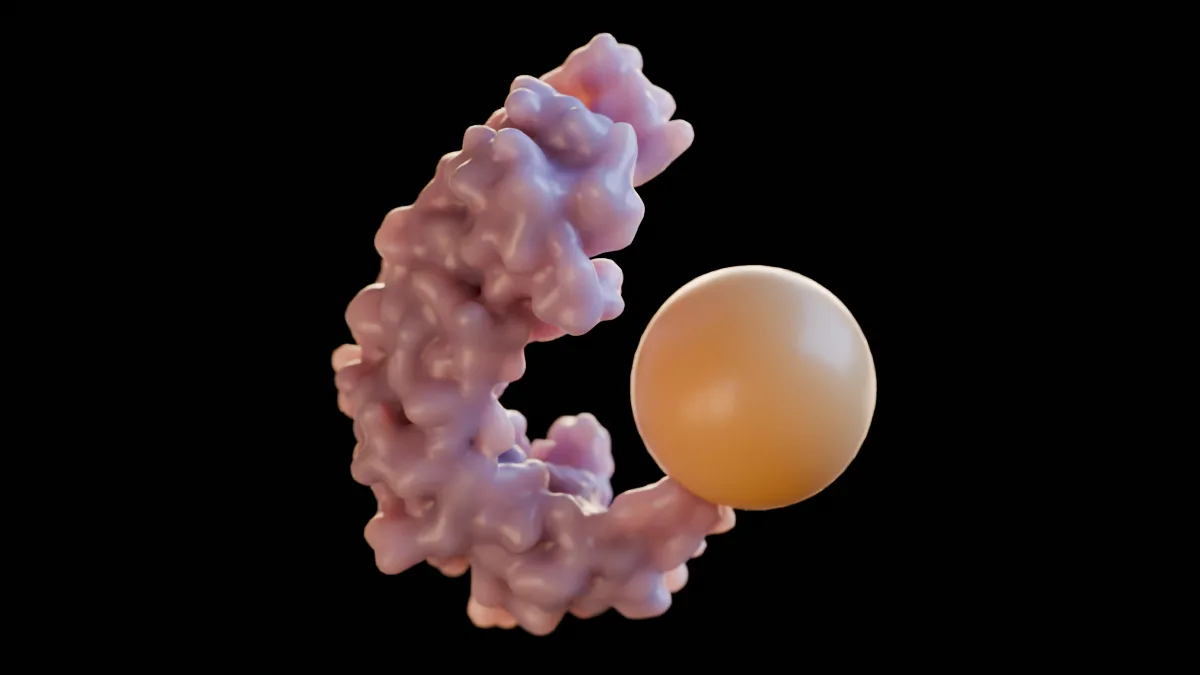
teilweise schematisch – einzelne Teile aus Strukturdaten, der Rest nach Fachliteratur
Proteine über etwa 40 kDa kommen nicht von allein durch die Kernpore. Tragen sie ein Kernlokalisierungssignal, bindet im Zytoplasma Importin-β (meist über den Adapter Importin-α) daran. Der Rezeptor heftet sich kurz und immer wieder an die FG-Wiederholungen im Zentralkanal und wandert so durch das Geflecht, das andere große Moleküle abweist. Im Kern bindet RanGTP an Importin-β und verdrängt die Fracht. Importin-β · RanGTP kehrt ins Zytoplasma zurück; dort wird GTP gespalten und Ran fällt ab. Gezeigt ist Importin-β ohne Ran (aus der Struktur 1IBR nur die Importin-Kette); die Fracht ist eine schematische Kugel an der Stelle, die im Kern RanGTP einnimmt.
Importin-β aus der Kristallstruktur 1IBR: nur die Importin-Kette und von ihr nur der N-terminale Teil (Reste 1–462 von 876), in der Form, die sie mit RanGTP einnimmt; die Oberfläche ist aus den Atomen dieser Kette neu berechnet. Die Fracht ist eine schematische Kugel von 4 nm an der Stelle, die im Kern RanGTP besetzt – in der Zelle bindet Fracht meist über den Adapter Importin-α. Kernpore und FG-Geflecht sind nicht gezeigt.
- Durchtritt durch die Pore: etwa 5–10 Millisekunden – im Atlas rund 700-fach verlangsamt.
- Eine Kernpore schafft bis zu etwa 1000 Durchtritte pro Sekunde, in beide Richtungen zugleich.
- Die Richtung gibt das RanGTP-Gefälle vor: viel RanGTP im Kern, fast keines im Zytoplasma.
- Kleine Proteine wie Ubiquitin (8,5 kDa) oder Calmodulin (16 kDa) diffundieren ohne Rezeptor durch die Pore.
Form aus Strukturdaten: PDB 1IBR