Zell-Atlas · 110 Modelle
Alle Bauteile der Zelle in 3D
Jedes Modell ist frei drehbar und zoombar, mit beschrifteten Bestandteilen – je Ort zuerst die Bauteile, dann die Moleküle, die man dort findet. Die Formen stammen aus Strukturdaten (PDB), im Maßstab 1 : 1 zueinander. Von jeder Seite führt „In der Zelle zeigen“ an den Ort, an dem das Modell in der Zelle sitzt.
Zellmembran
die Hülle der Zelle, samt Zuckermantel außen
Moleküle
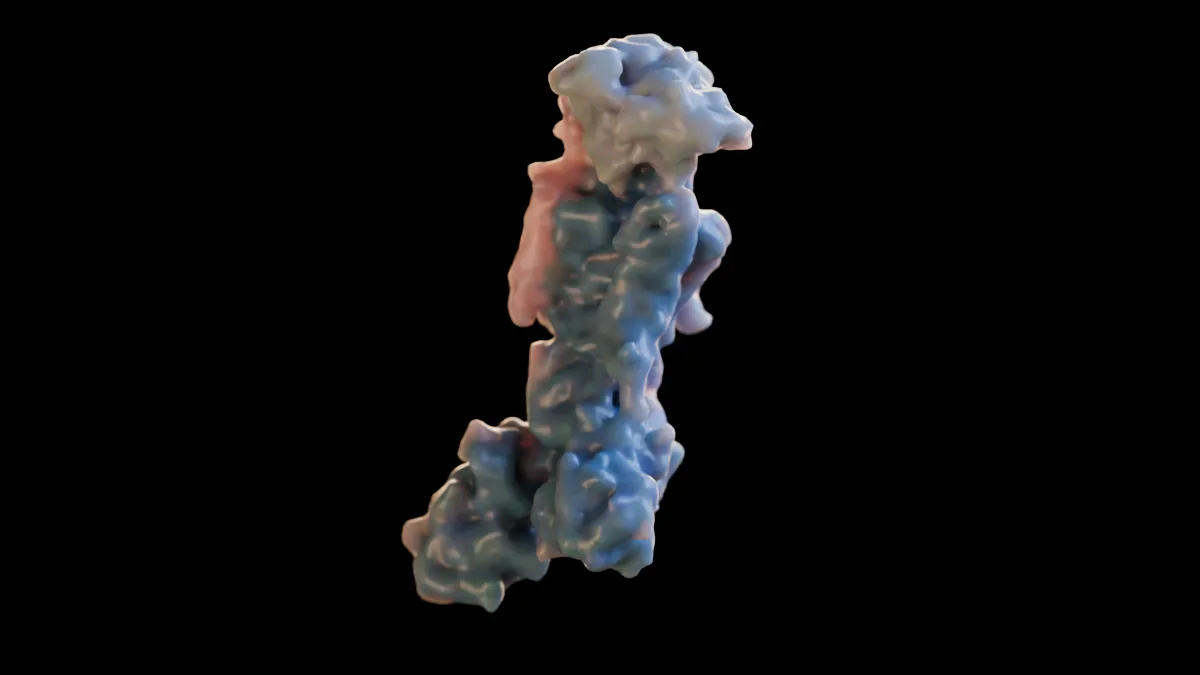
Natrium-Kalium-Pumpe
≈ 15 nm hoch
Pumpt je ATP drei Na⁺ aus der Zelle und zwei K⁺ hinein. Hält das Membranpotenzial aufrecht; Angriffspunkt der Herzglykoside.
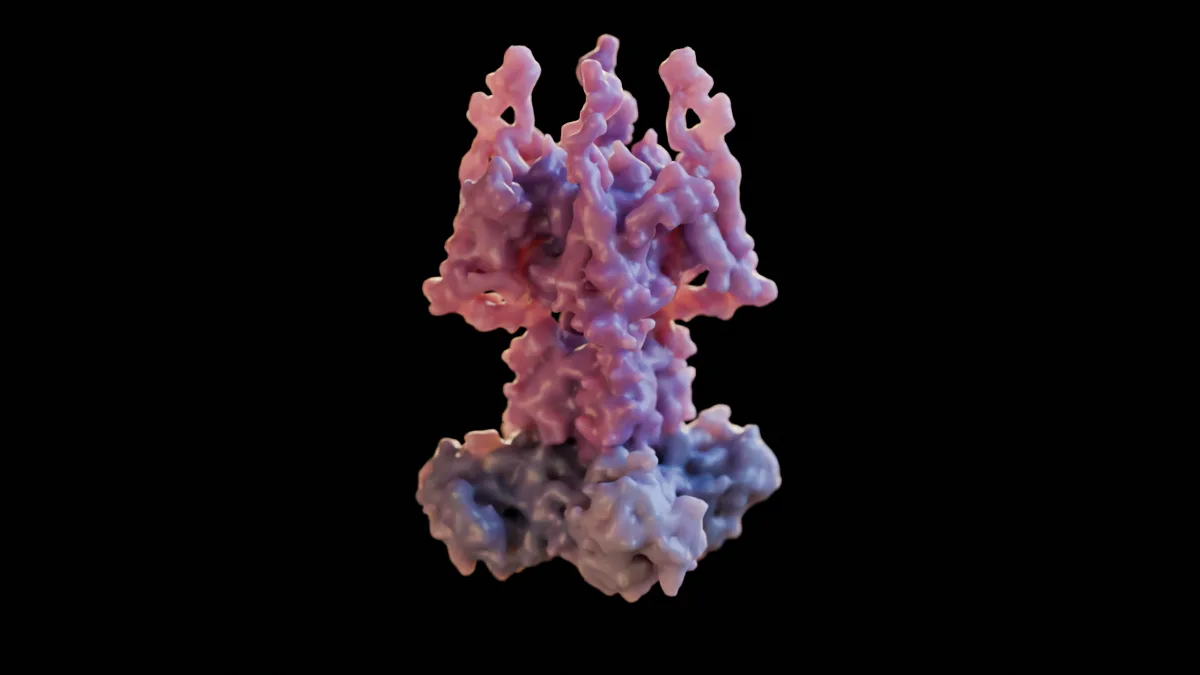
Spannungsgesteuerter Kaliumkanal (Kv1.2)
≈ 12 nm breit, Tetramer
Öffnet bei Depolarisation und lässt K⁺ ausströmen – so endet das Aktionspotenzial.
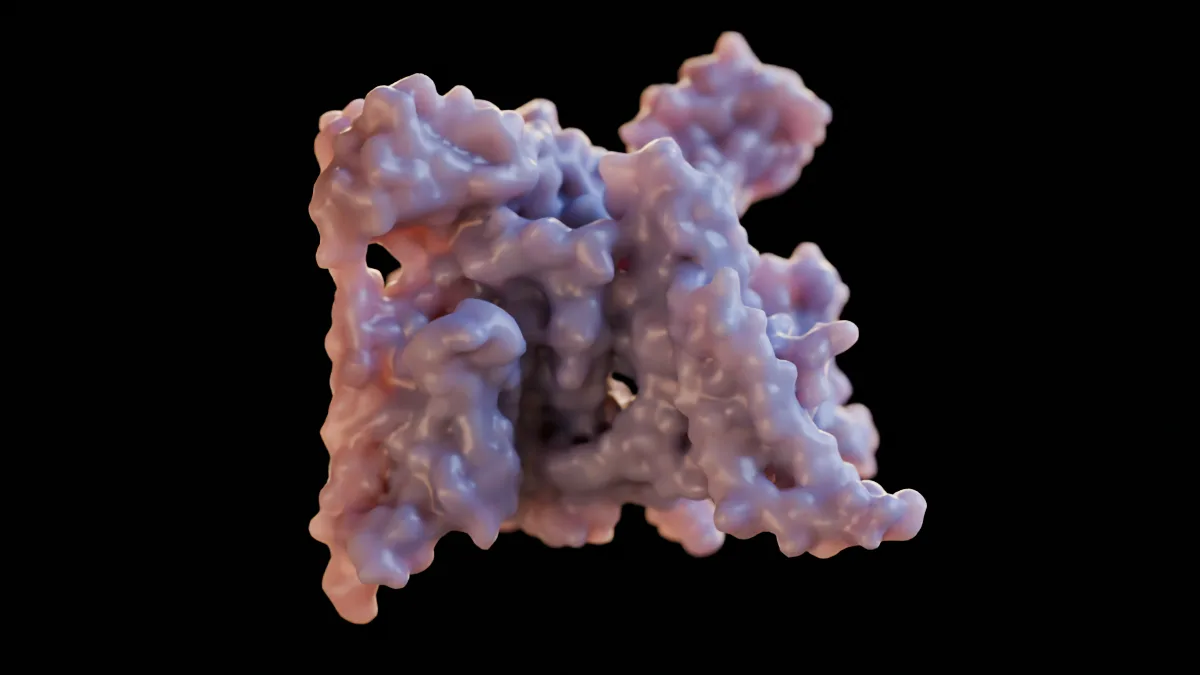
Spannungsgesteuerter Natriumkanal (Nav1.7)
≈ 13 nm breit; α-Untereinheit 226 kDa mit 24 Membranhelices
Öffnet bei Depolarisation für etwa eine Millisekunde – der Aufstrich des Aktionspotenzials.
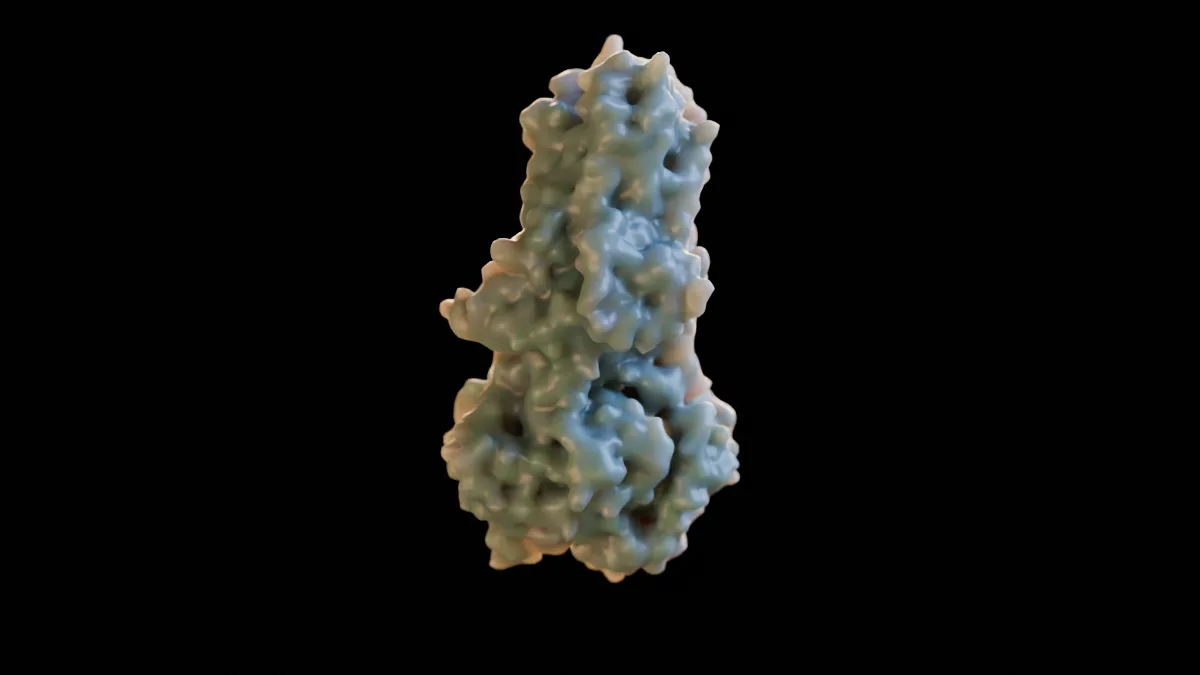
CFTR-Chloridkanal
≈ 13 nm lang, 168 kDa
Chloridkanal der Epithelien; sein Ausfall verursacht die Mukoviszidose.
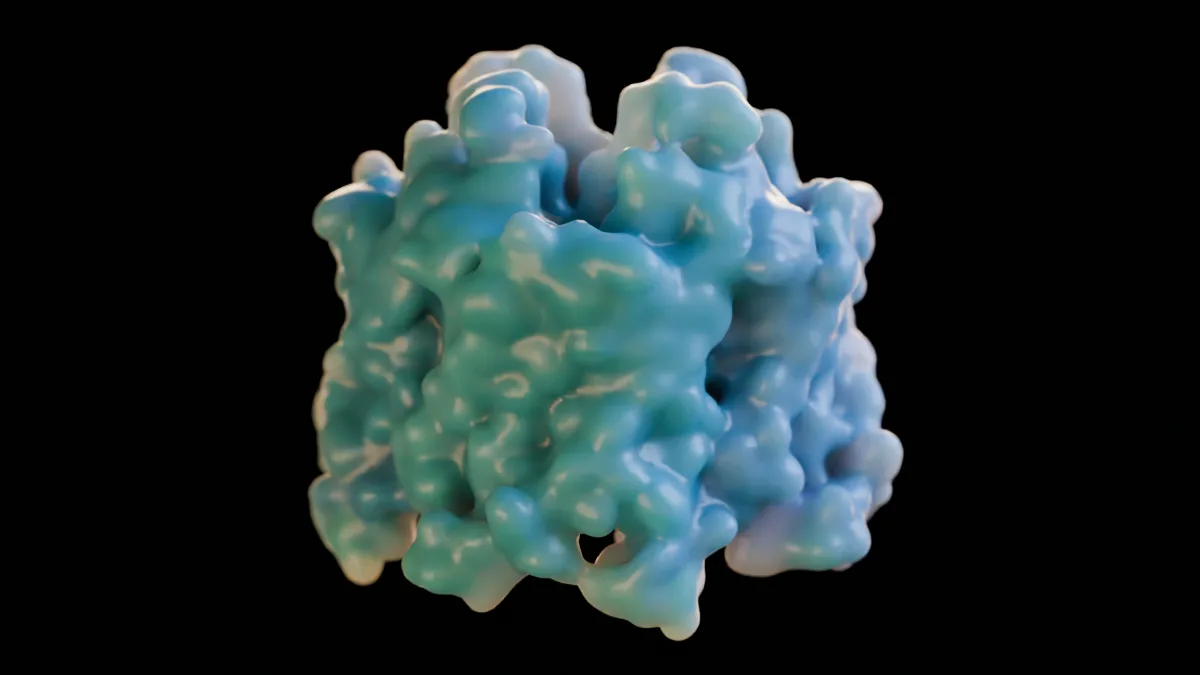
Aquaporin-1
≈ 7 nm, Tetramer
Wasserkanal: Jede der vier Poren lässt Wasser passieren, hält aber Protonen und Ionen zurück.
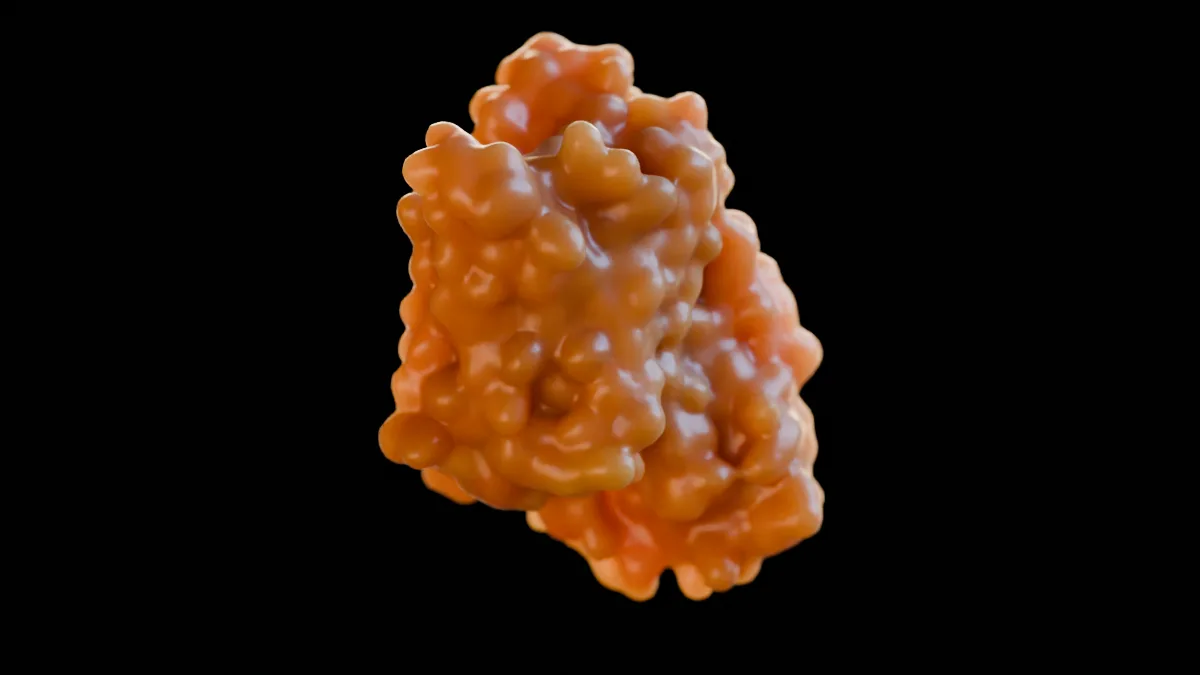
Glukosetransporter GLUT1
≈ 7 nm, 54 kDa
Schleust Glukose entlang des Gefälles in die Zelle; wechselt dabei zwischen außen-offener und innen-offener Form.
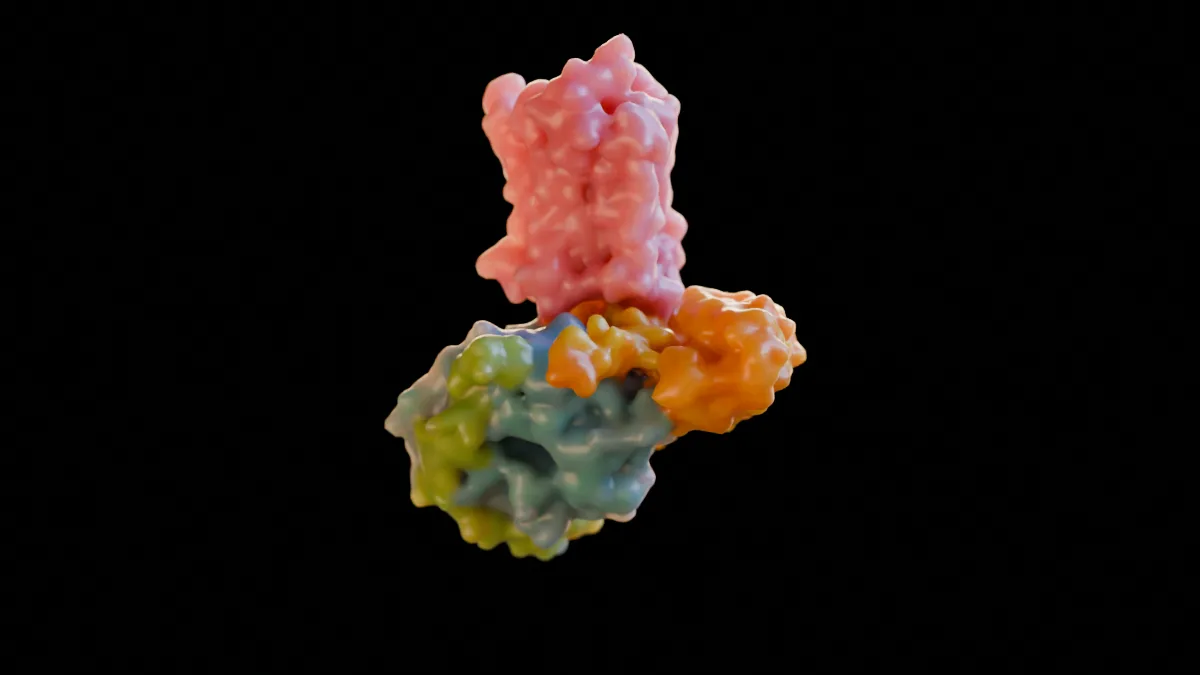
β2-Adrenozeptor mit Gs-Protein
≈ 12 nm hoch
G-Protein-gekoppelter Rezeptor für Adrenalin, hier im Moment der Signalübergabe an das G-Protein. Ziel von Betablockern und Asthmasprays.
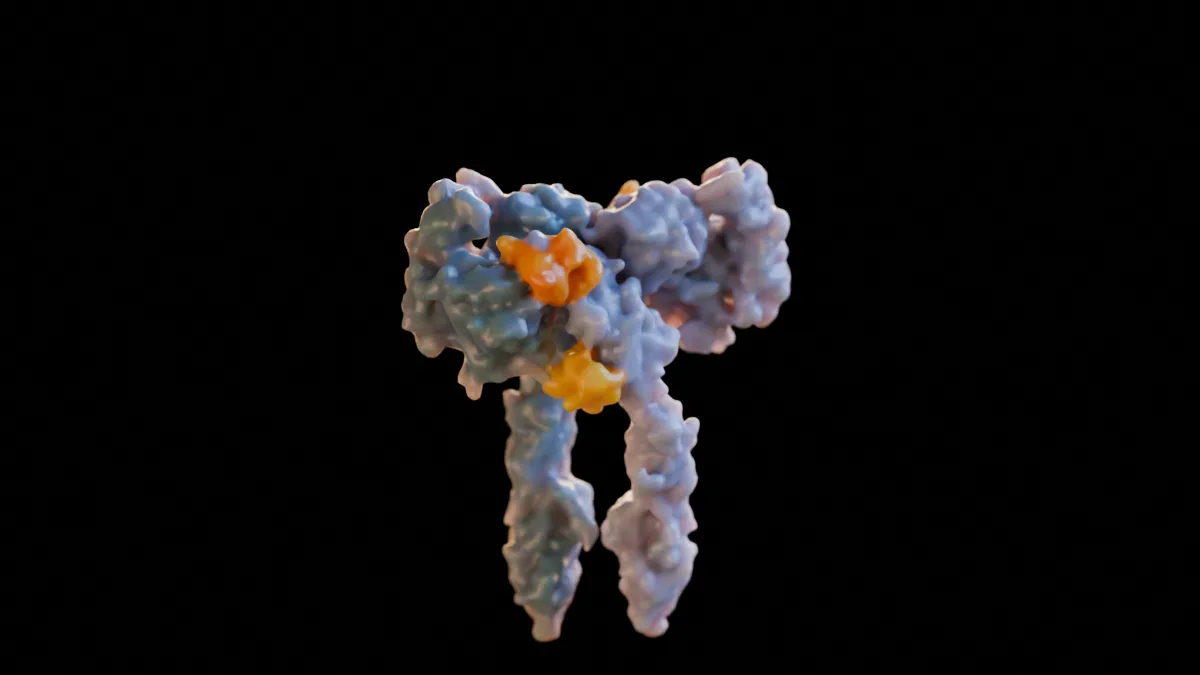
Insulinrezeptor (Ektodomäne mit 4 Insulin)
≈ 17 nm hoch (Außenteil); ganzer Rezeptor ≈ 460 kDa mit Zuckerketten
Rezeptor-Tyrosinkinase, über die Insulin auf die Zelle wirkt.
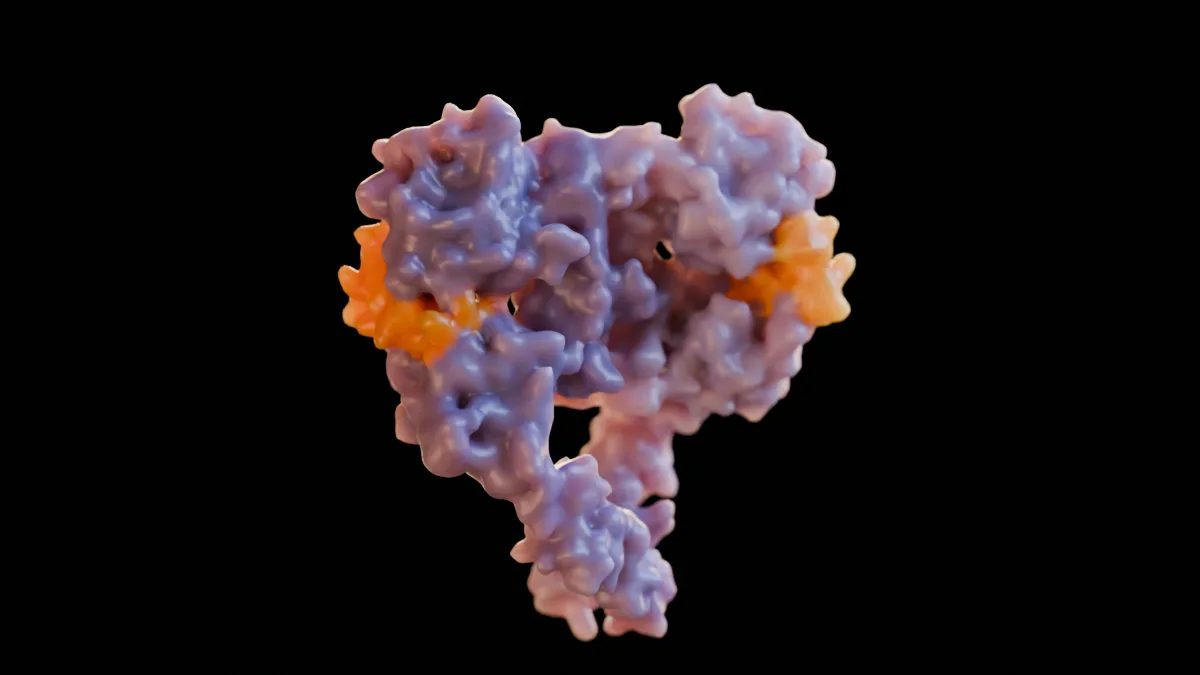
EGF-Rezeptor (Ektodomänen-Dimer mit EGF)
≈ 13 nm (Außenteil des Dimers); ganzer Rezeptor 170 kDa je Kette
Rezeptor-Tyrosinkinase für den epidermalen Wachstumsfaktor.
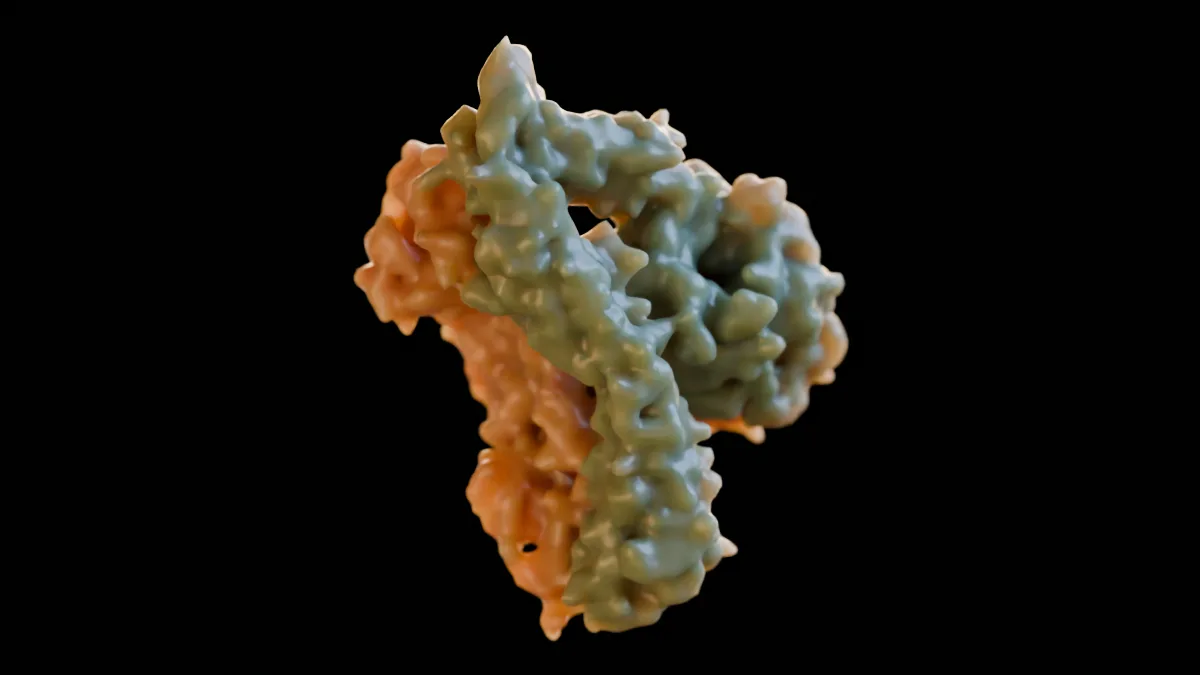
Integrin αIIbβ3 (Ektodomäne, gebeugt)
≈ 14 nm gebeugt, gestreckt ≈ 20 nm; Außenteil 174 kDa
Verbindet das Zytoskelett durch die Membran hindurch mit der Umgebung der Zelle.
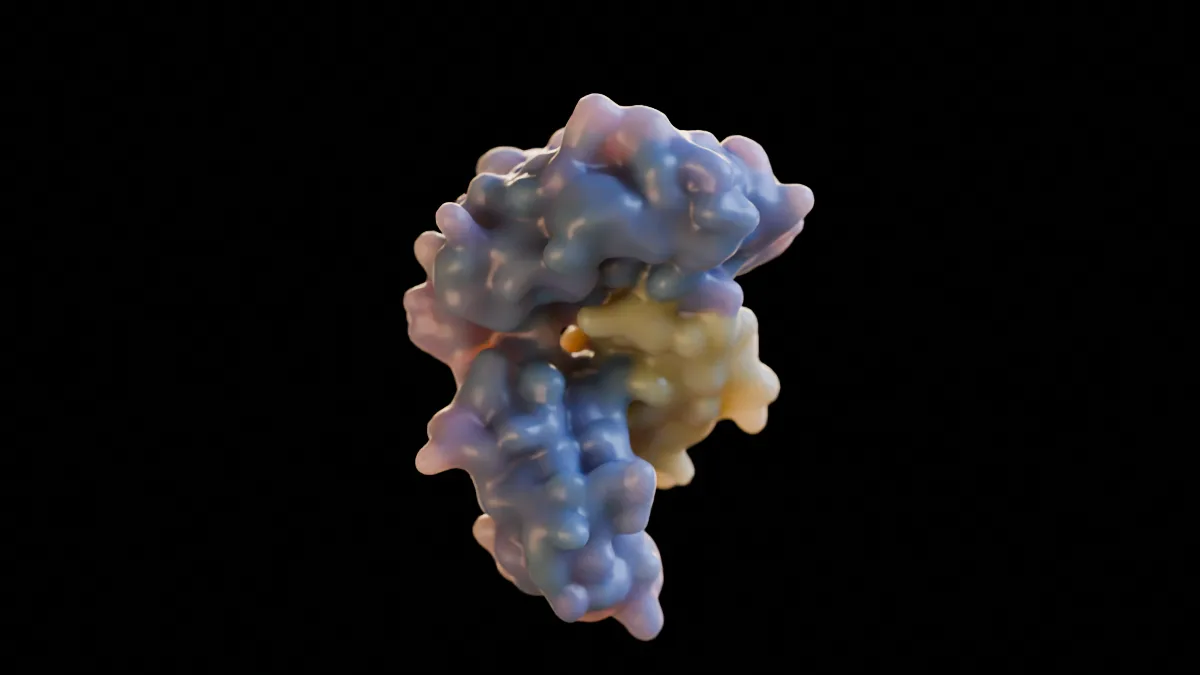
MHC-Klasse-I-Molekül (HLA-B27 mit Peptid)
≈ 8 nm, 44 kDa + β2-Mikroglobulin 12 kDa
Zeigt dem Immunsystem Bruchstücke der Proteine aus dem Zellinneren.
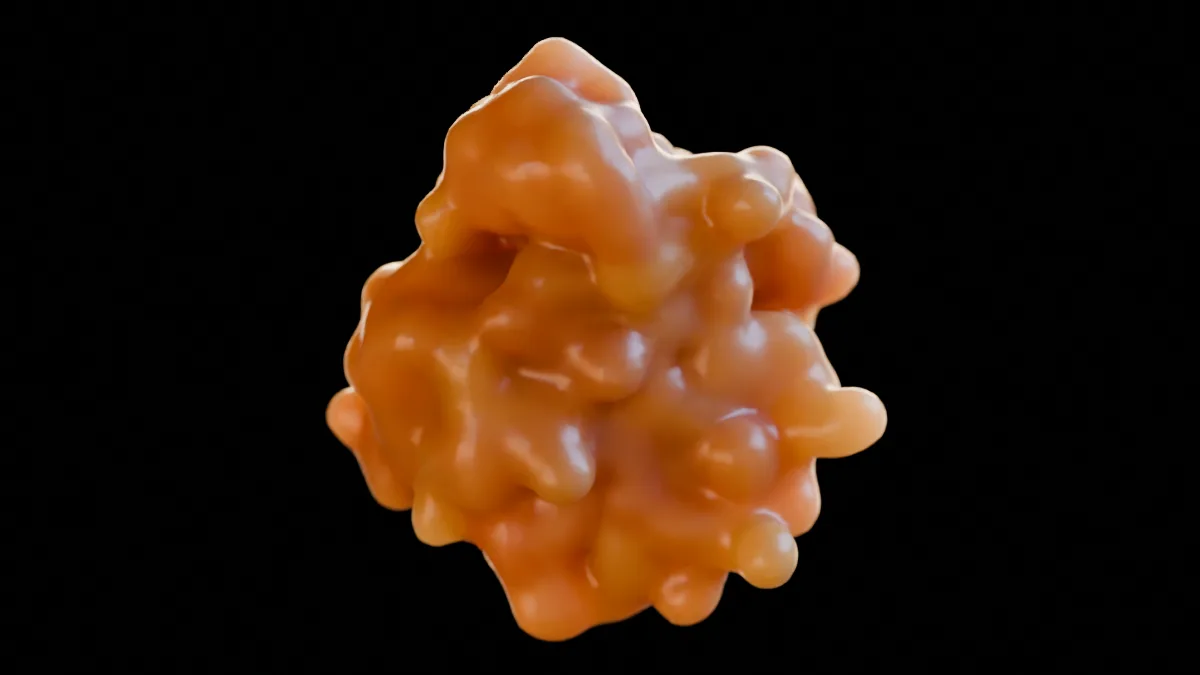
Ras (H-Ras mit GTP)
≈ 4,5 nm, 21 kDa
Kleiner GTP-Schalter für Wachstumssignale; in vielen Tumoren dauerhaft eingeschaltet.
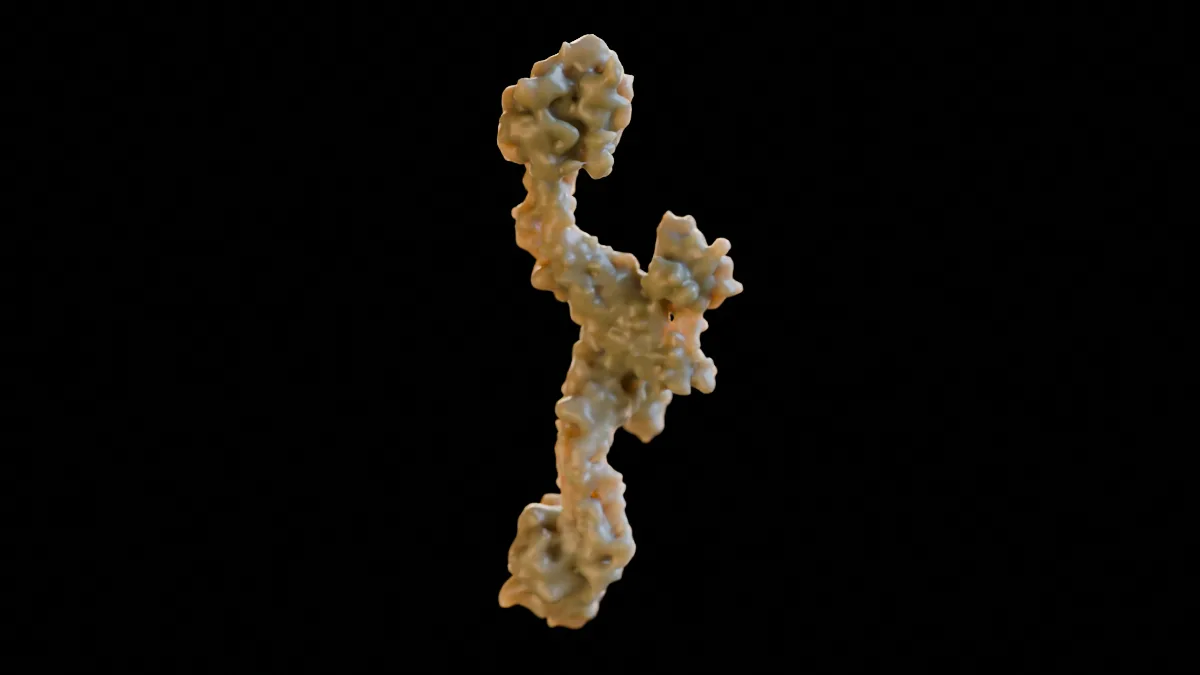
Dynamin-1 (Dimer)
≈ 23 nm lang, 2 × 100 kDa
GTPase, die einknospende Vesikel von der Membran abschnürt.
Zytosol
die dicht gepackte Flüssigkeit zwischen den Organellen
Bauteile
Zytosol
führt zu: Moleküle im Abschnitt „Zytosol“
Dicht gedrängte Lösung aus Enzymen, tRNA, Metaboliten und Ionen.
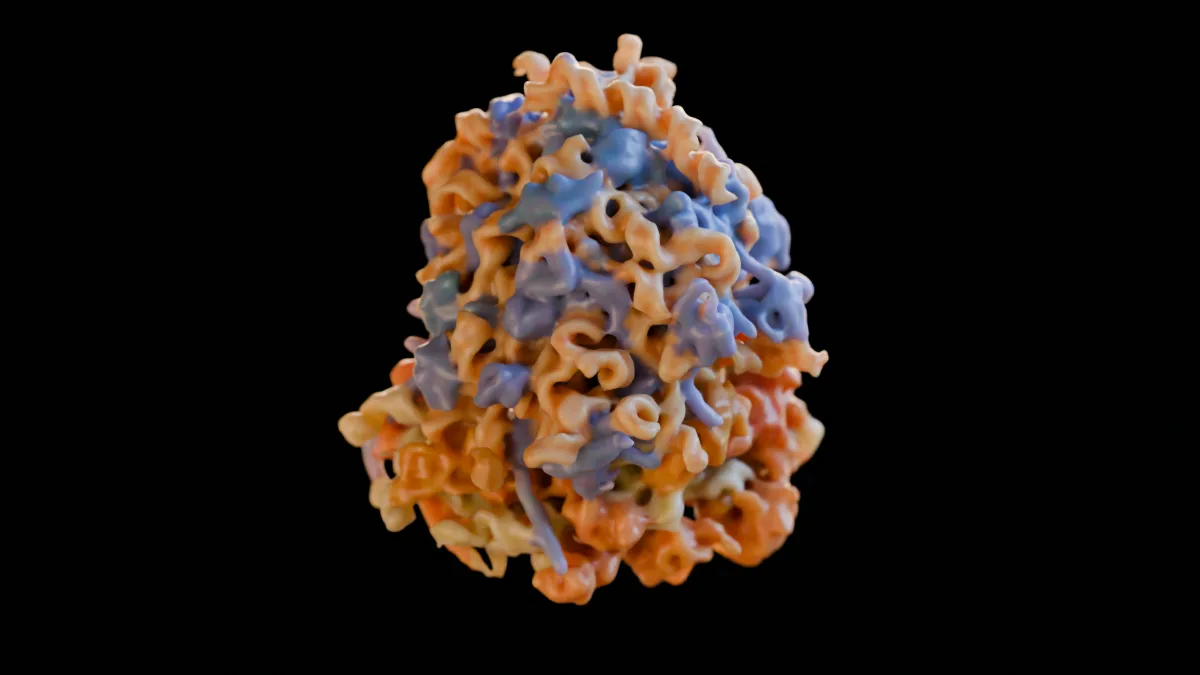
Ribosom
25–30 nm
Proteinfabrik aus RNA und Proteinen; übersetzt mRNA in Aminosäureketten.
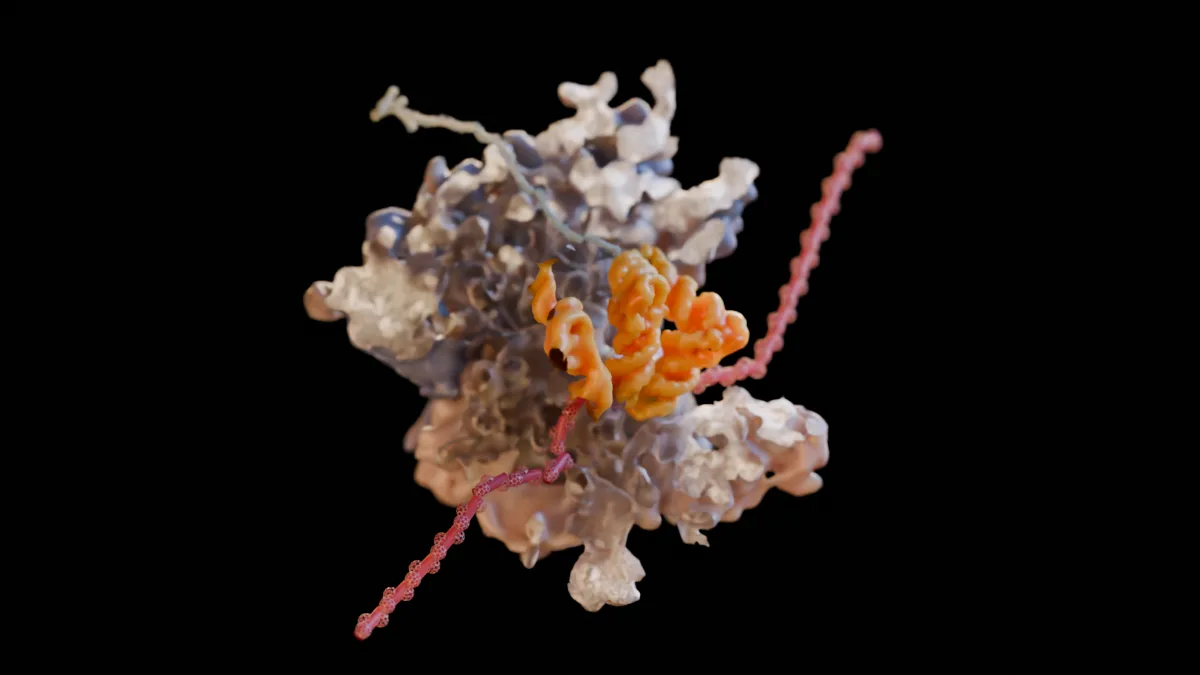
mRNA am Ribosom
≈ 1,2 nm dick; 0,6–0,7 nm je Nukleotid, eine typische mRNA hat 2000–3000 Nukleotide
Einzelsträngige Boten-RNA: Sie läuft durch die kleine Untereinheit des Ribosoms und wird dort Codon für Codon abgelesen.
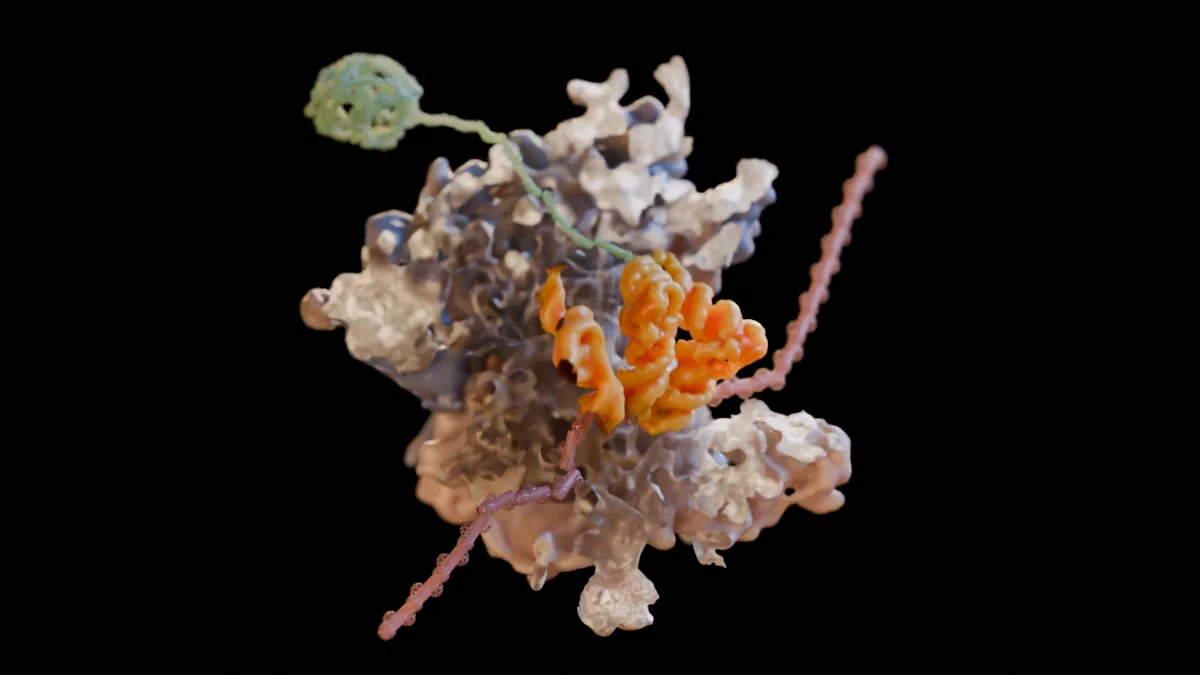
Wachsende Polypeptidkette
0,38 nm je Aminosäure (gestreckt); ein Protein aus 400 Aminosäuren ist gefaltet ≈ 5 nm groß
Das entstehende Protein: Es wächst am Ribosom um eine Aminosäure je Codon und verlässt es durch den Austrittstunnel.
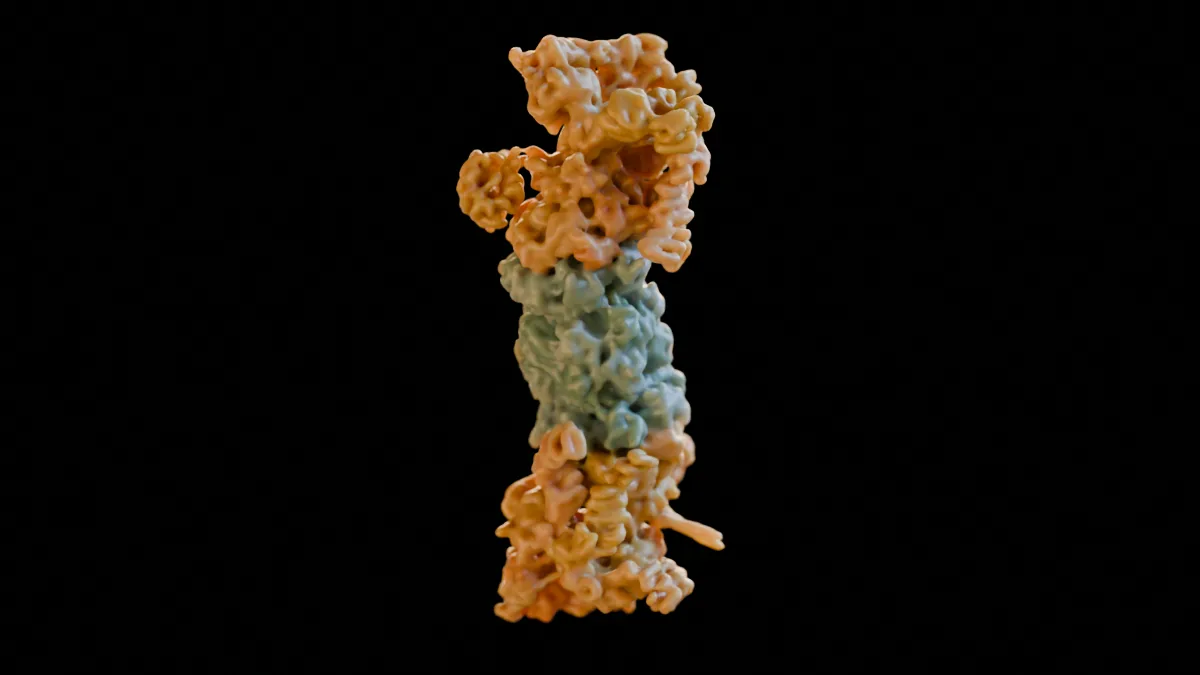
26S-Proteasom
≈ 45 nm lang, 15 nm breit
Tonnenförmiger Schredder für markierte Proteine.
Moleküle
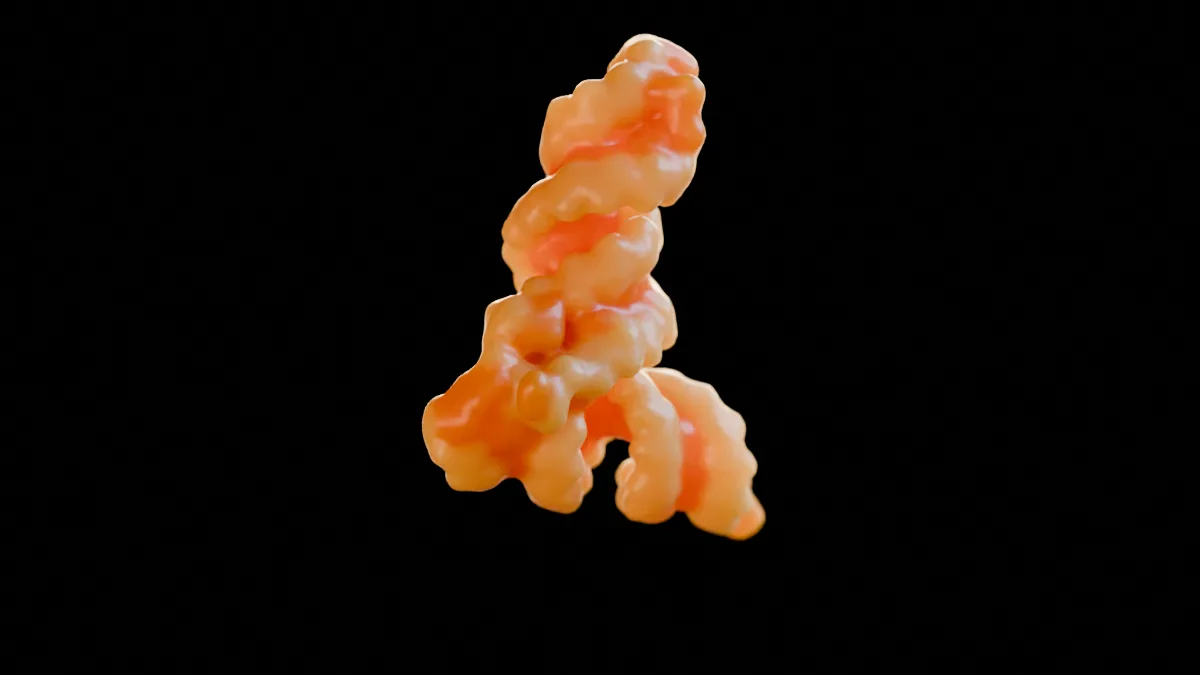
tRNA
≈ 7,5 nm, 76 Nukleotide
Adapter der Proteinsynthese: trägt am einen Ende die Aminosäure, am anderen das passende Anticodon.
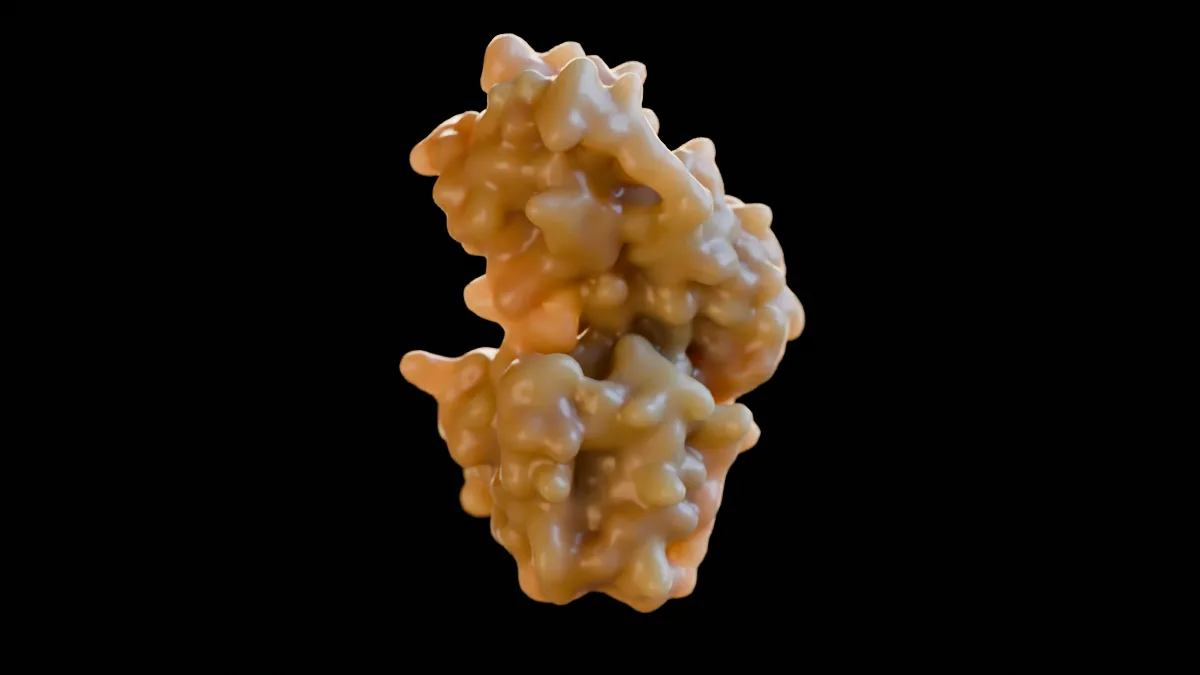
Elongationsfaktor eEF1A
≈ 8 nm, 50 kDa
Bringt jede neue Aminoacyl-tRNA zum Ribosom.
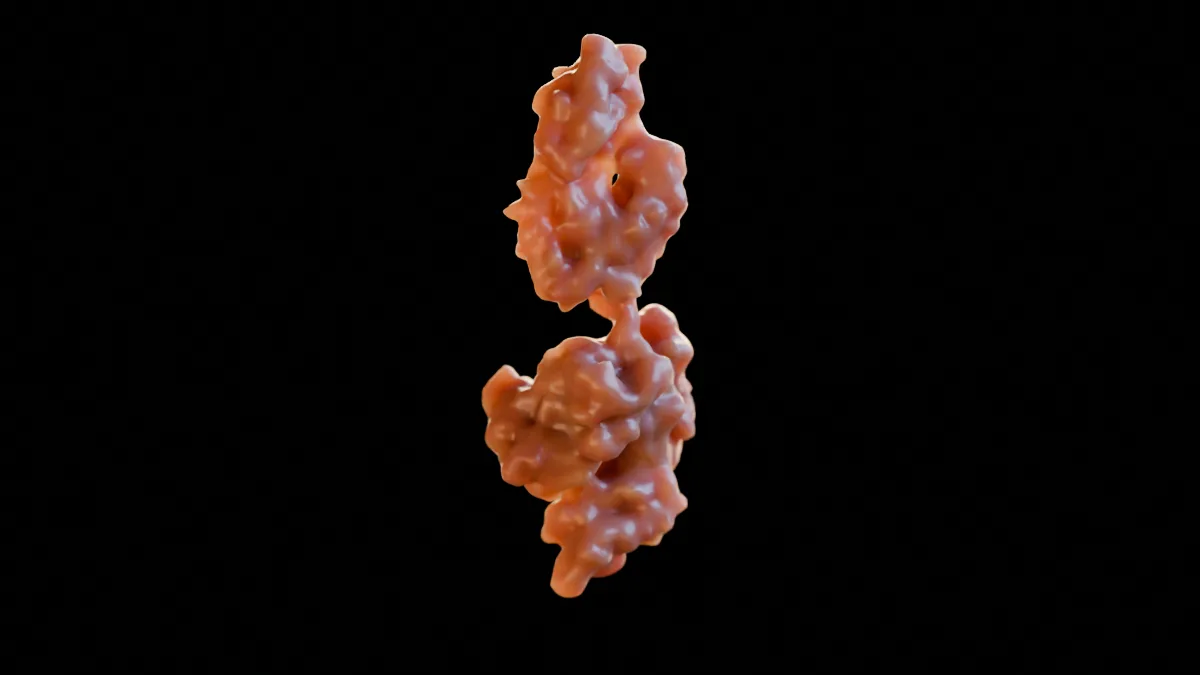
Hsp70 (hier: DnaK aus E. coli)
≈ 14 nm gestreckt, 70 kDa
Chaperon, das ungefaltete Proteine festhält und unter ATP-Verbrauch wieder freigibt.
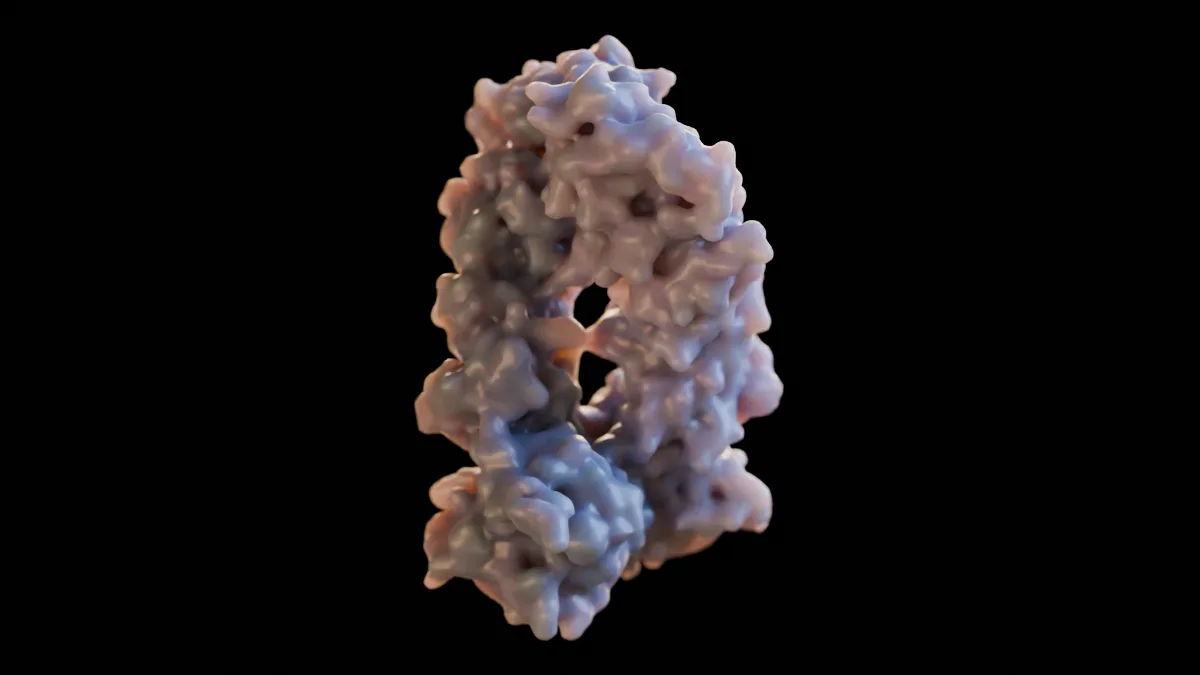
Hsp90
≈ 12 nm, Dimer 180 kDa
Chaperon: hält Signalproteine wie Kinasen und Hormonrezeptoren in einer aktivierbaren Form.
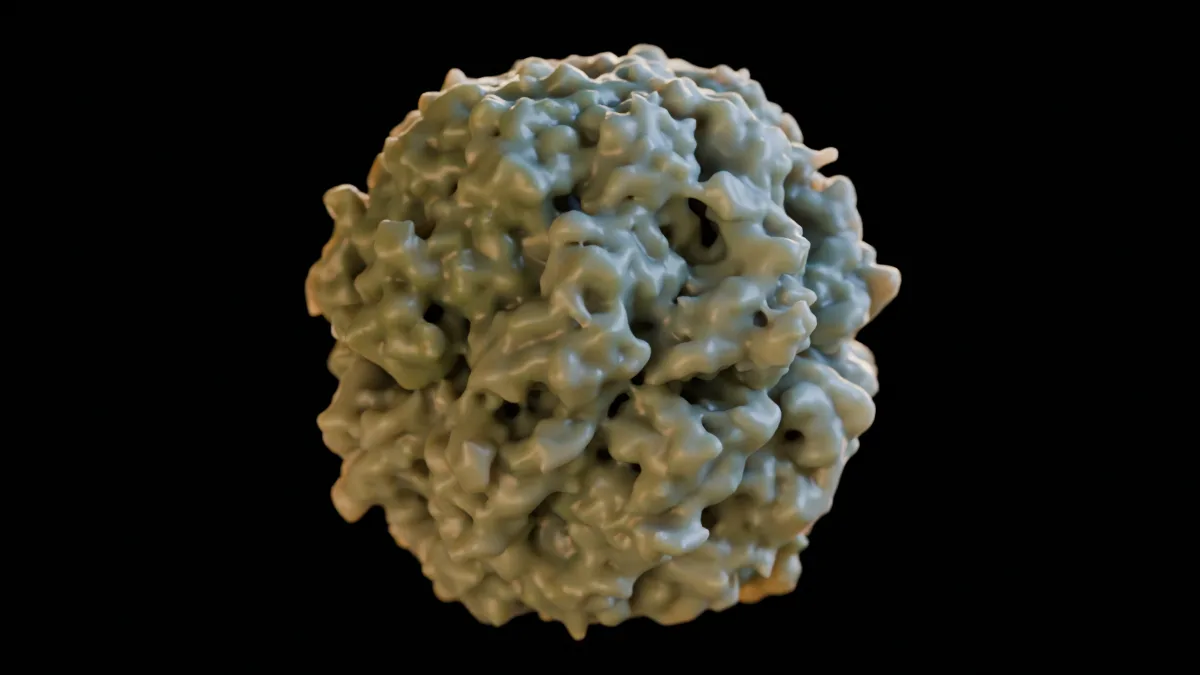
TRiC/CCT-Chaperonin
≈ 16 nm, 2 × 8 Untereinheiten, ≈ 1 MDa
Faltungskammer des Zytosols, unentbehrlich für Aktin und Tubulin.
Ubiquitin
≈ 4 nm, 8,5 kDa
Kleines Markierungsprotein. Eine Kette aus Ubiquitin kennzeichnet Proteine für den Abbau im Proteasom.
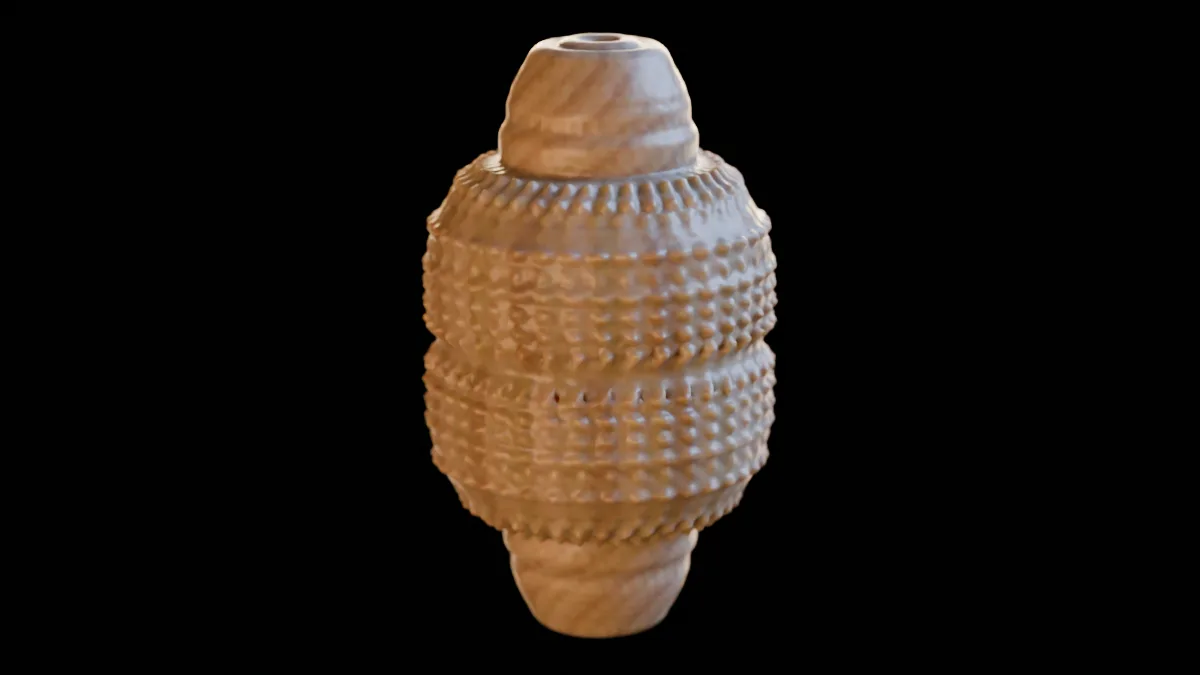
Vault-Partikel
67 × 40 nm, Hülle aus 78 Ketten; ganzes Partikel ≈ 13 MDa
Riesige hohle Tonne aus Protein und RNA, deren Aufgabe bis heute ungeklärt ist.
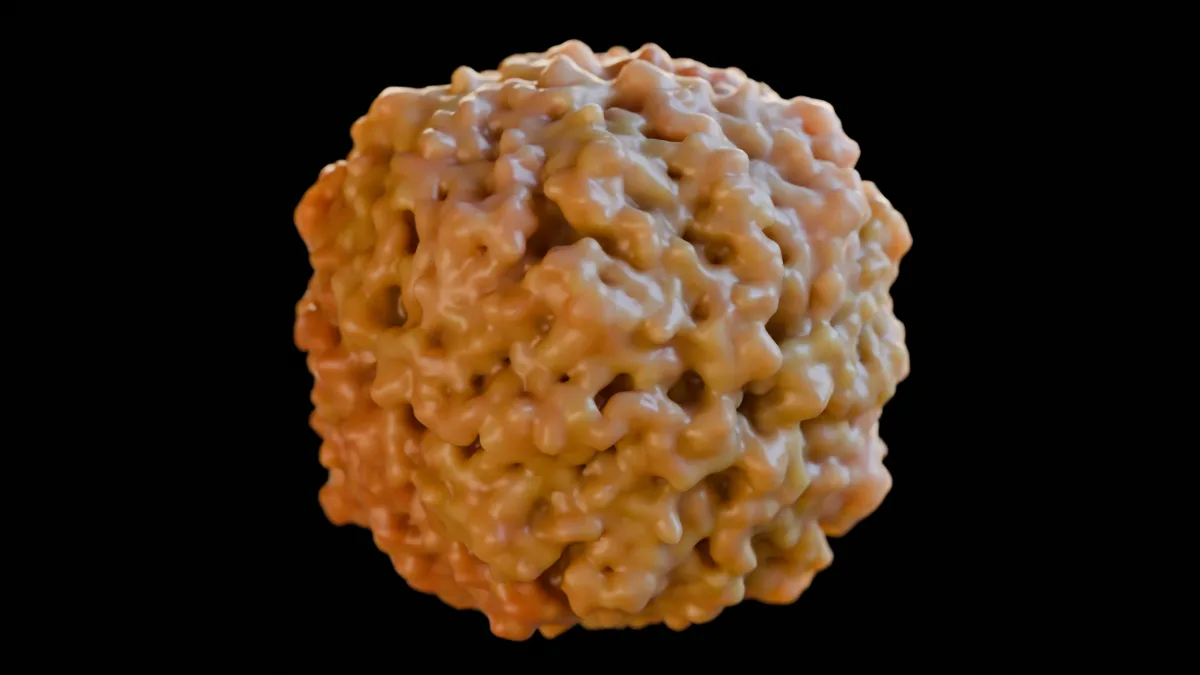
Ferritin
12 nm Hohlkugel, 24 Untereinheiten
Eisenspeicher: Im Hohlraum lagern bis zu 4500 Eisenatome als ungiftiges Mineral.
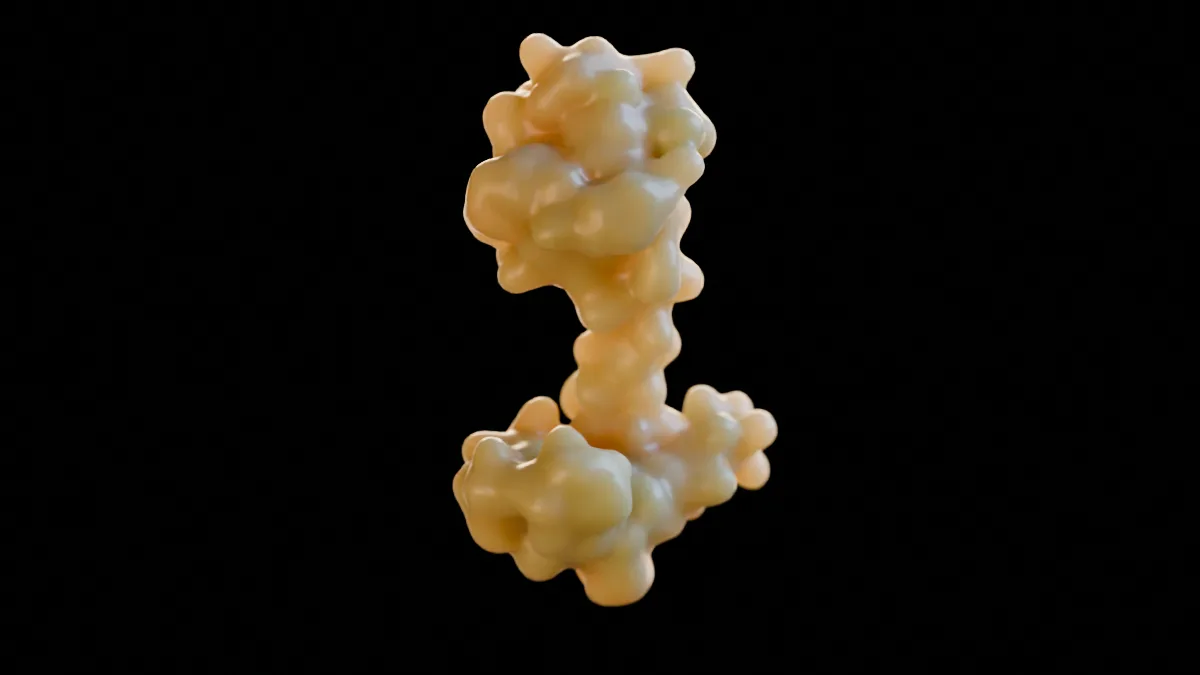
Calmodulin
≈ 6,5 nm, 17 kDa
Calcium-Sensor in Hantelform. Bindet vier Ca²⁺-Ionen und schaltet dann Dutzende Zielproteine.
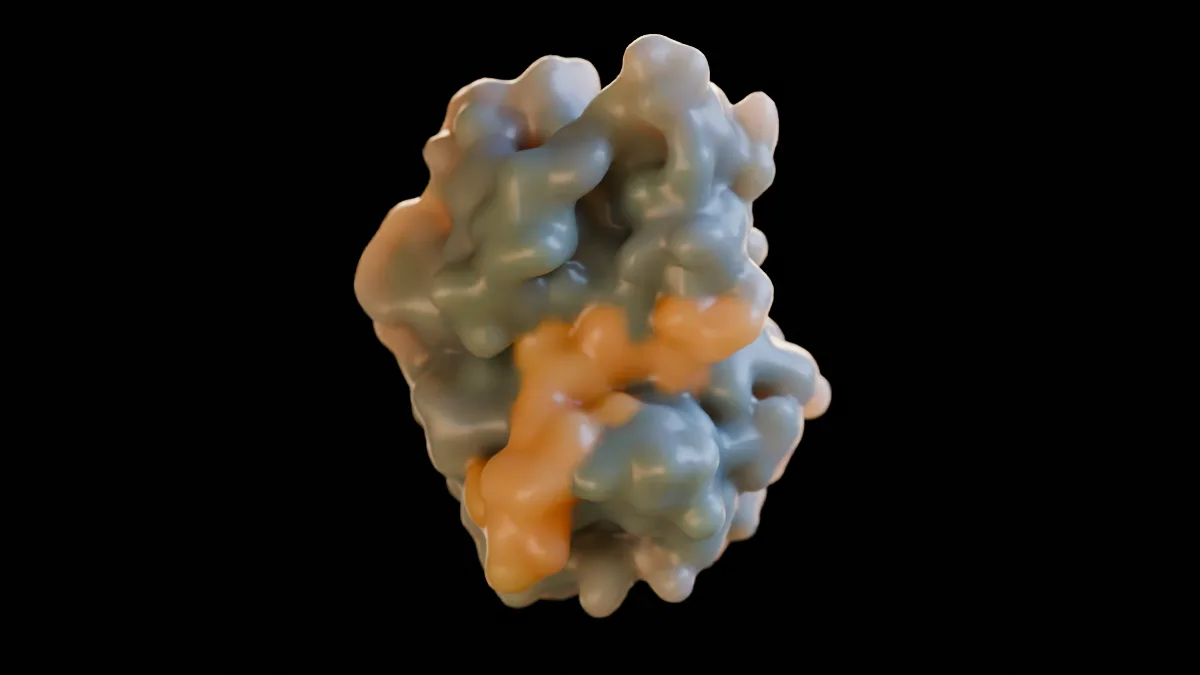
Proteinkinase A (katalytische Untereinheit)
≈ 6,5 nm, 41 kDa
Ausführendes Enzym des Botenstoffs cAMP.
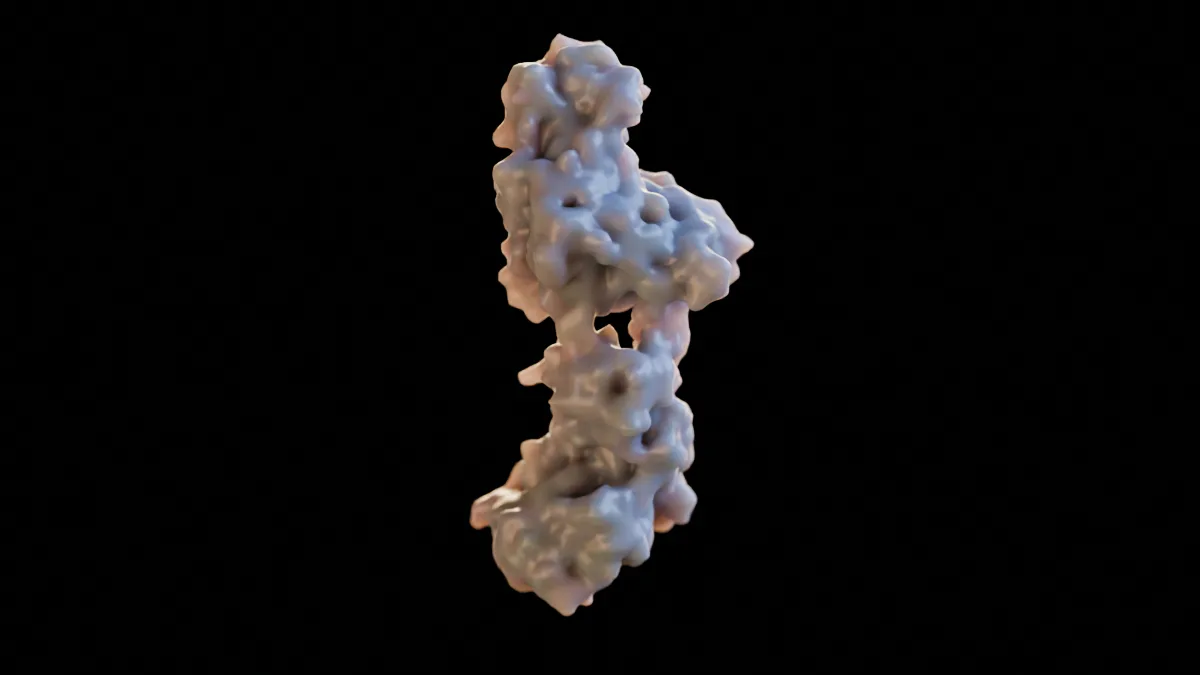
Hexokinase I
≈ 14 nm, 100 kDa
Erster Schritt der Glykolyse: hält Glukose in der Zelle fest.
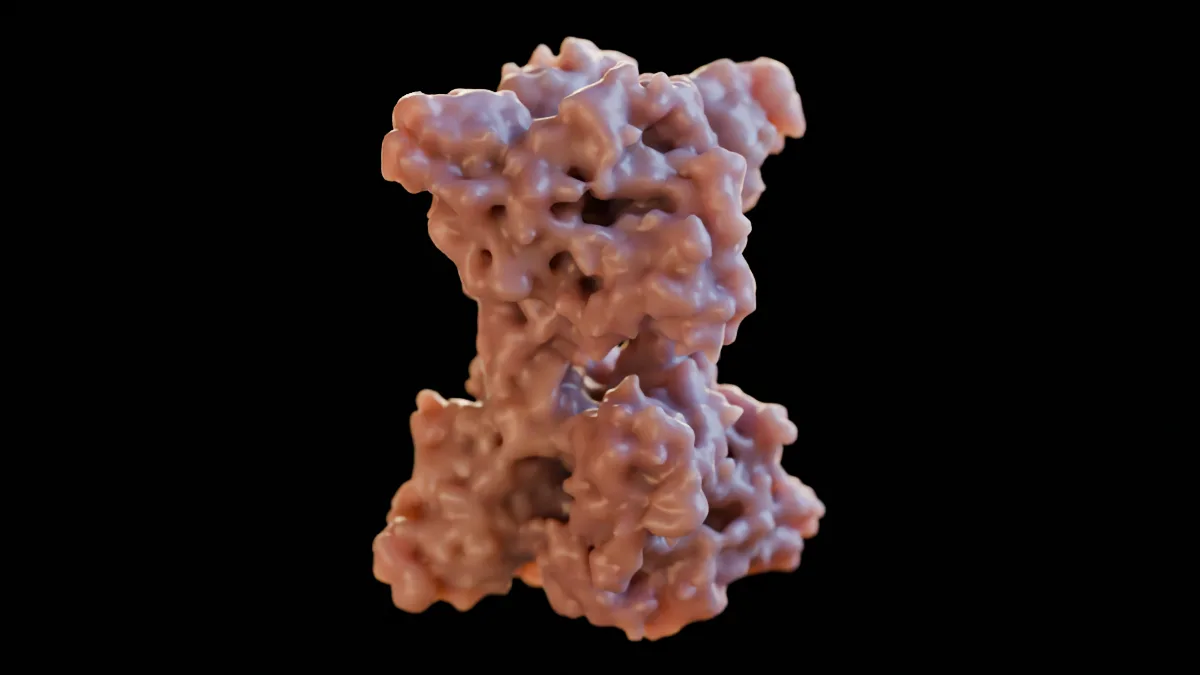
Phosphofructokinase-1 (Tetramer)
≈ 14 nm, Tetramer ≈ 340 kDa
Schrittmacherenzym der Glykolyse.
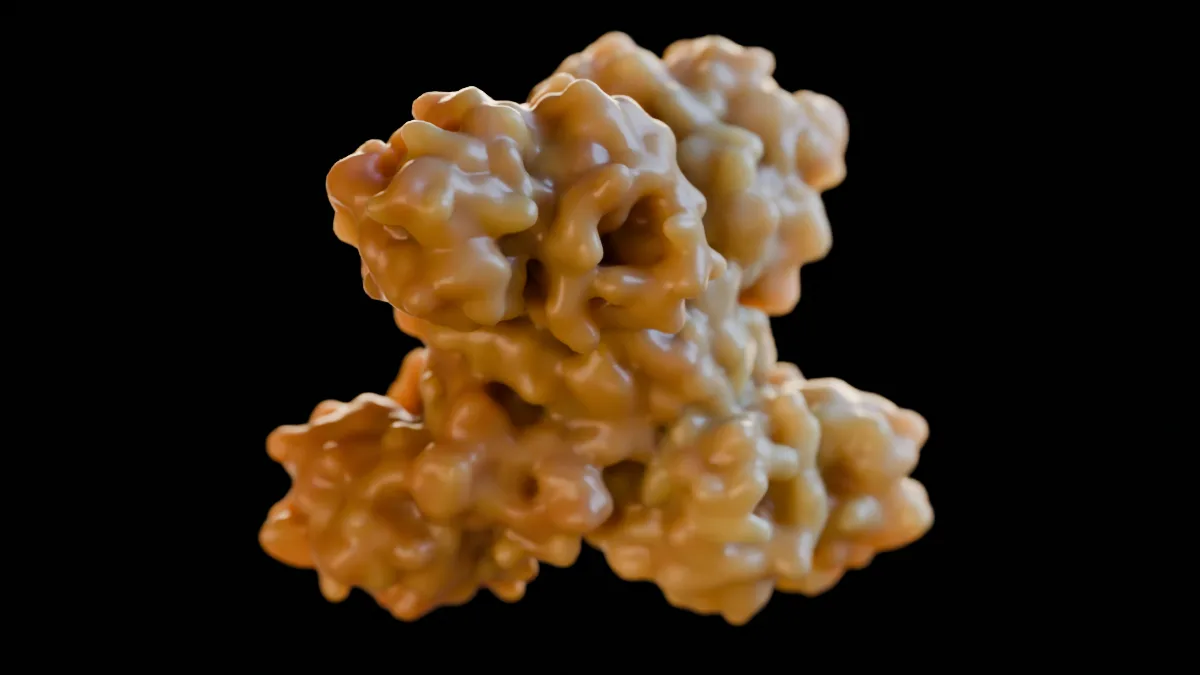
Aldolase
≈ 10 nm, Tetramer 160 kDa
Spaltet in der Glykolyse den Zucker Fruktose-1,6-bisphosphat in zwei Dreifachzucker.
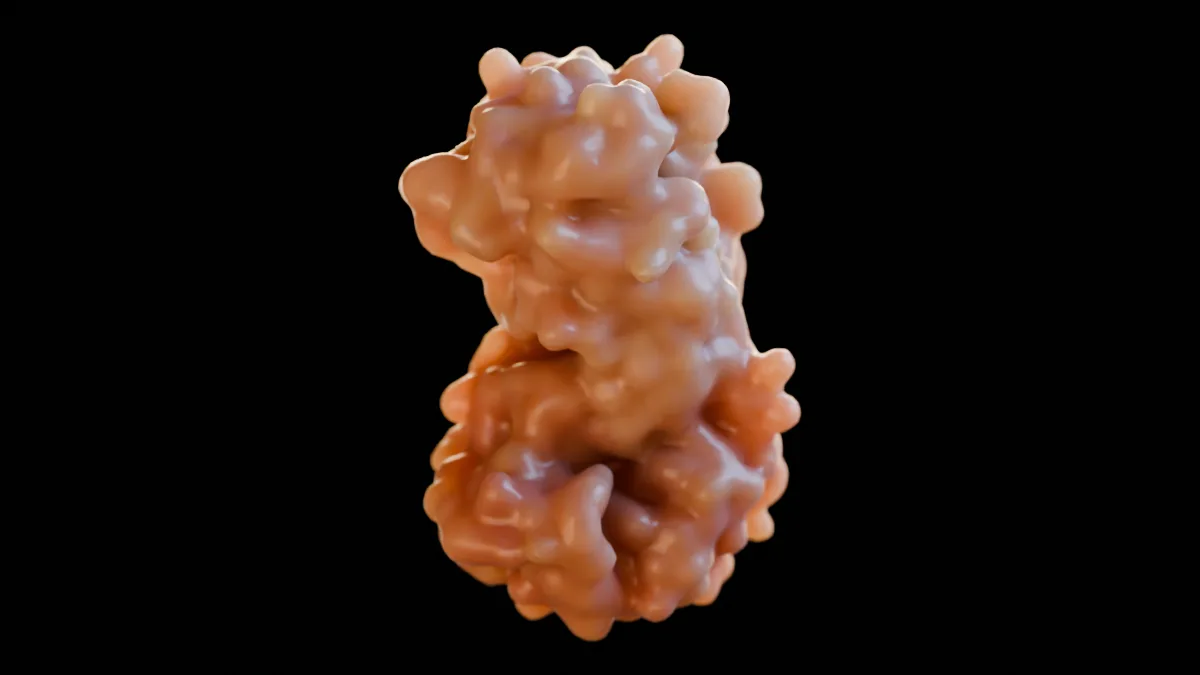
Triosephosphat-Isomerase
≈ 8 nm, Dimer 54 kDa
Wandelt die beiden Dreifachzucker der Glykolyse ineinander um – so schnell, dass nur die Diffusion sie bremst.
GAPDH (Glycerinaldehyd-3-phosphat-Dehydrogenase)
≈ 9 nm, Tetramer 144 kDa
Enzym der Glykolyse, eines der häufigsten Proteine im Zytosol. Hier entsteht das erste NADH des Zuckerabbaus.
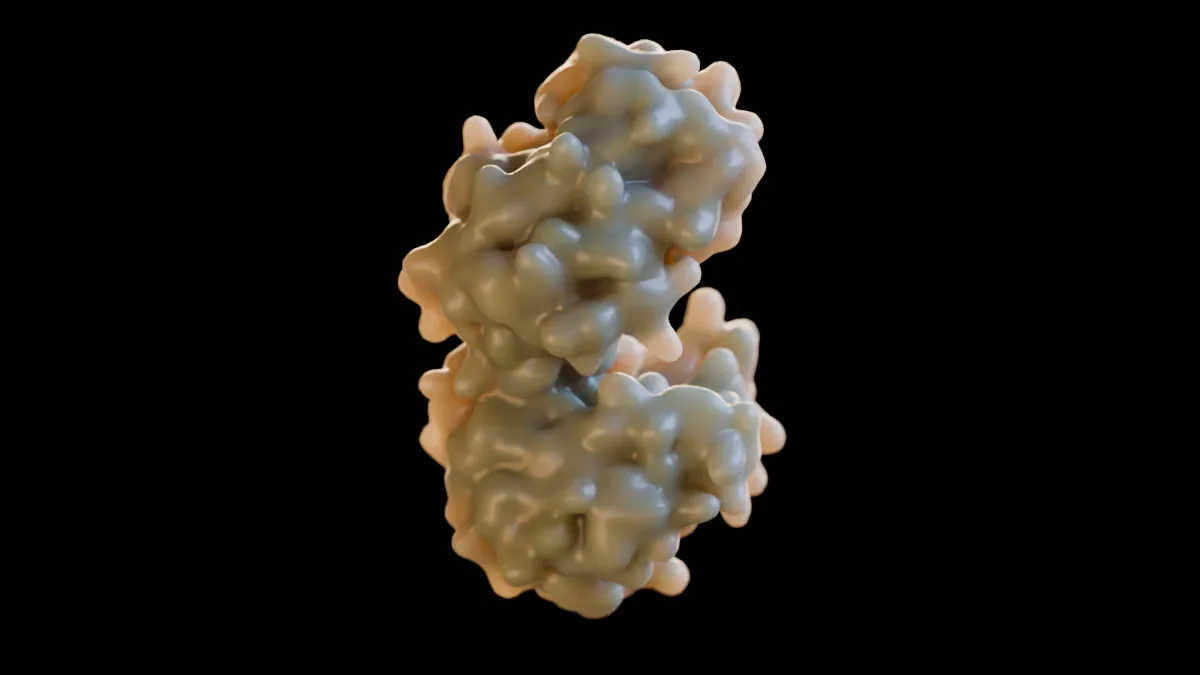
Phosphoglyceratkinase
≈ 8 nm, 45 kDa
Gewinnt das erste ATP der Glykolyse. Die beiden Hälften klappen wie ein Scharnier um das Substrat.
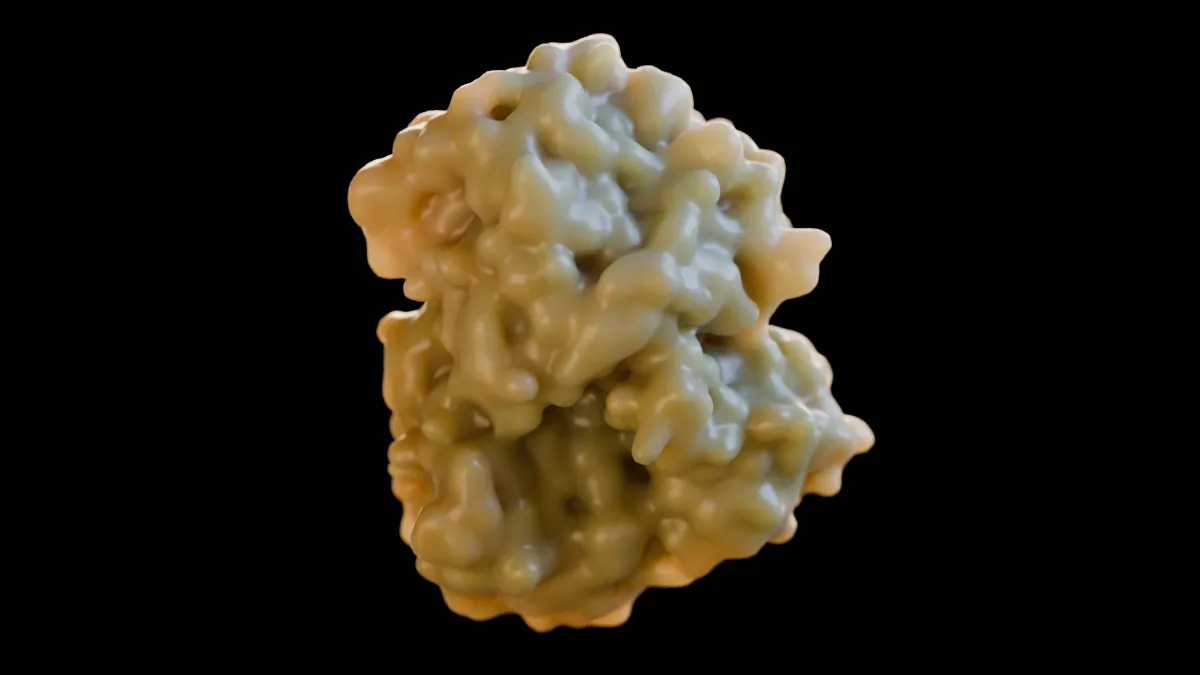
Enolase
≈ 8,5 nm, Dimer 94 kDa
Vorletzter Schritt der Glykolyse: Es entsteht Phosphoenolpyruvat.
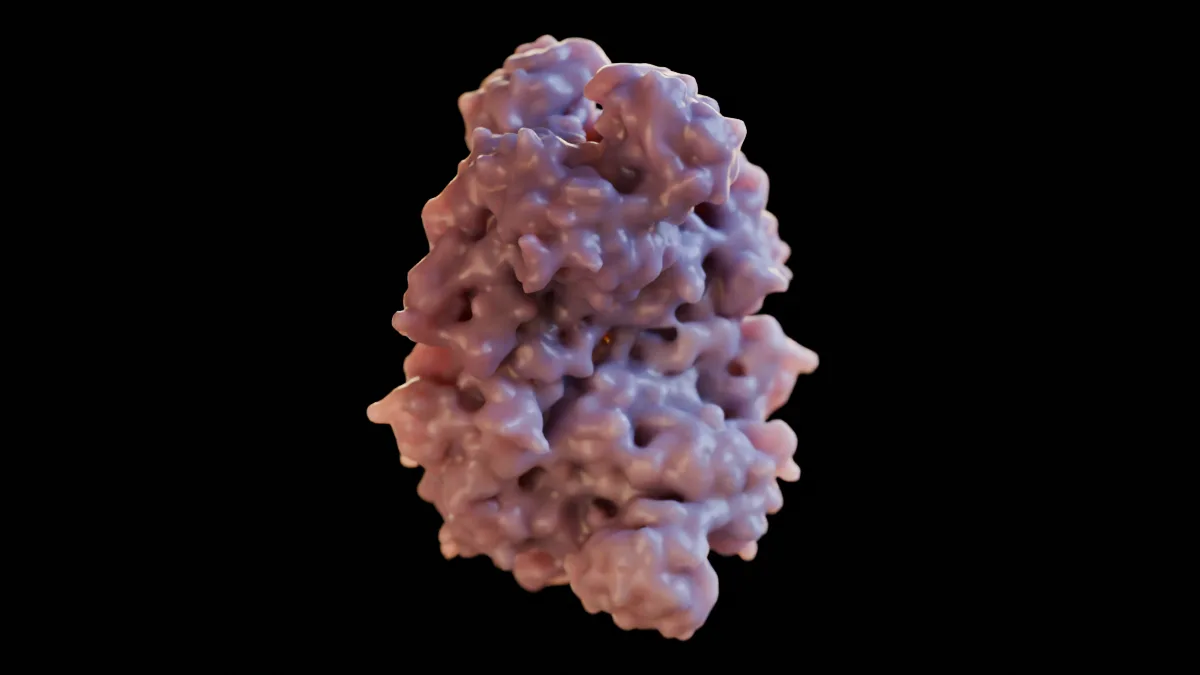
Pyruvatkinase M2
≈ 13 nm, Tetramer 232 kDa
Letzter Schritt der Glykolyse: überträgt Phosphat auf ADP, es entstehen Pyruvat und ATP.
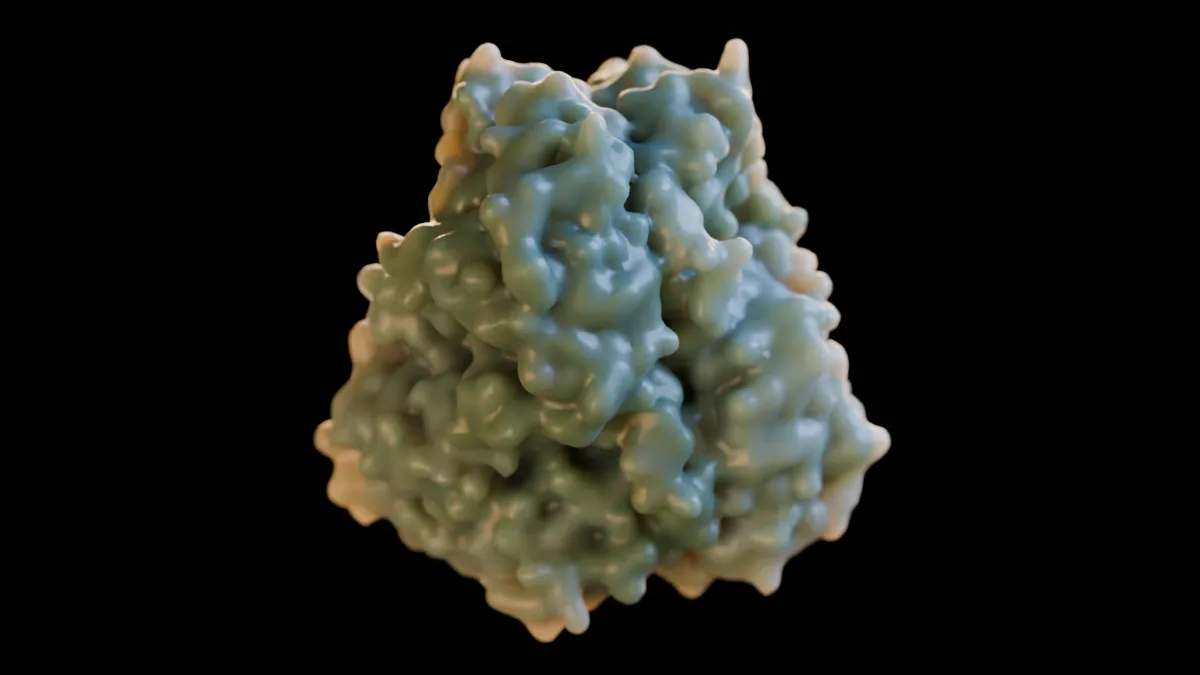
Laktatdehydrogenase
≈ 9 nm, Tetramer 140 kDa
Wandelt Pyruvat in Laktat um, wenn Sauerstoff knapp ist. Im Blut ein Marker für Zellschäden.
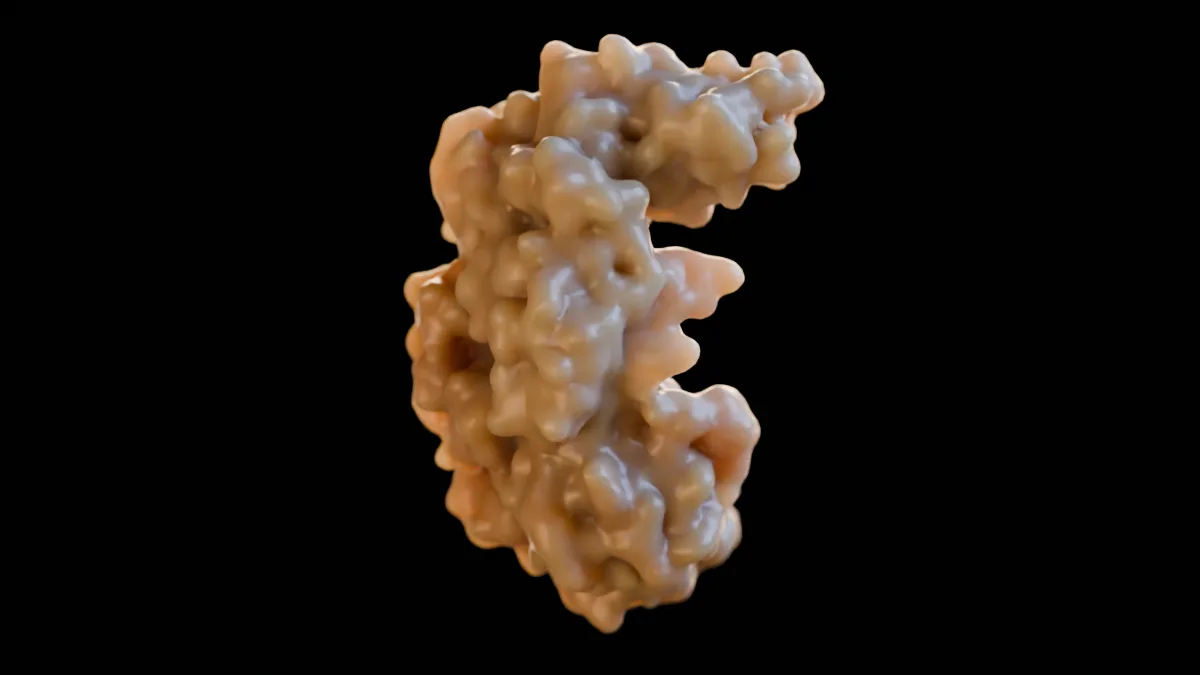
Kreatinkinase (Dimer)
≈ 10 nm, Dimer 86 kDa
Füllt den ATP-Vorrat in Sekundenbruchteilen aus Kreatinphosphat auf.
Zytoskelett
Schienen, Seile und Streben, die die Zelle formen und bewegen
Bauteile
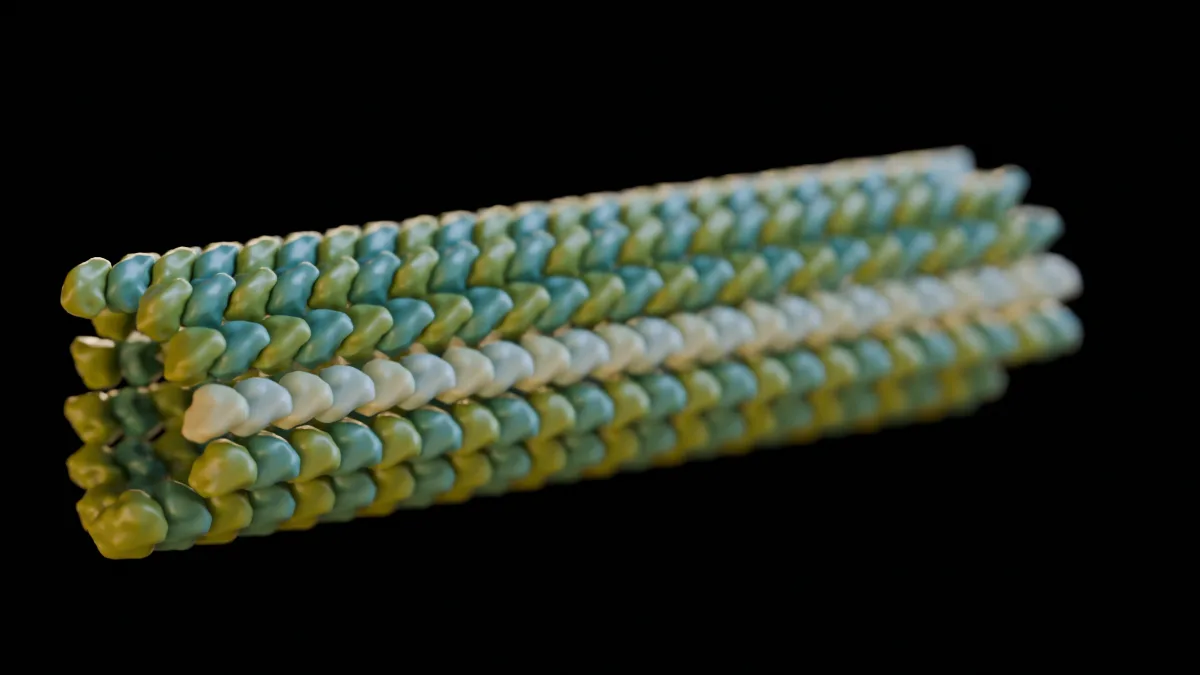
Mikrotubulus
25 nm Außendurchmesser, bis zu vielen µm lang
Hohlröhre aus Tubulin; Schiene für Motorproteine und Gerüst der Zelle.
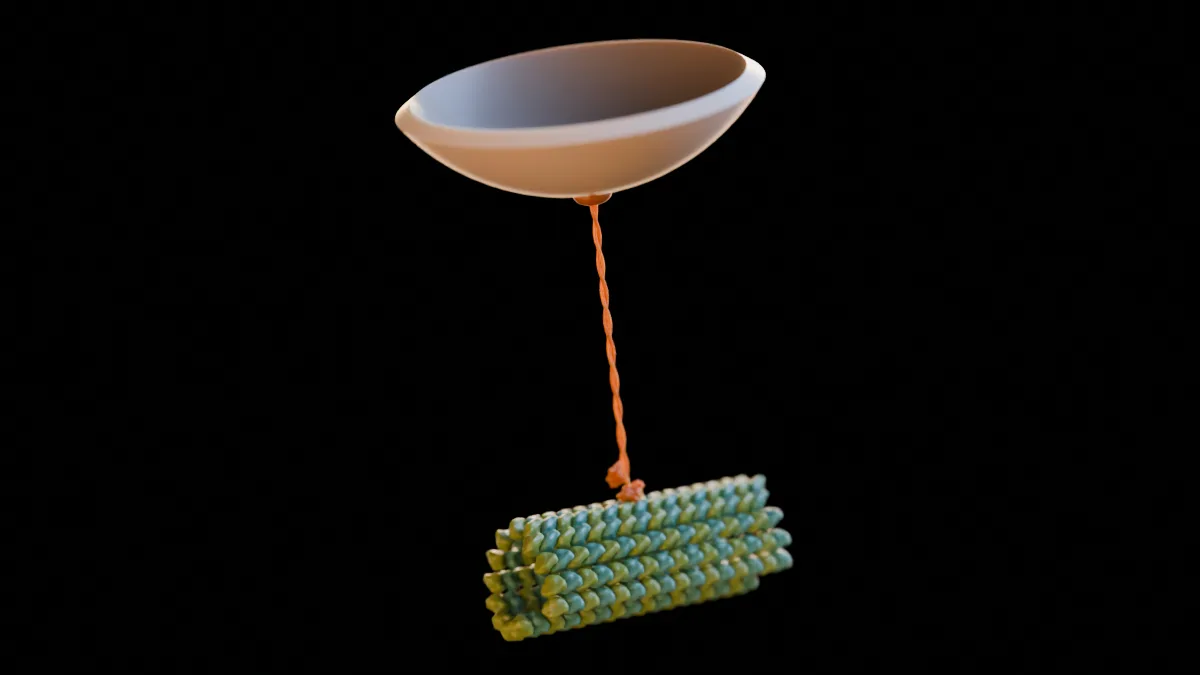
Kinesin-1 mit Fracht
Motorkopf ≈ 7 nm, ganzes Molekül ≈ 80 nm lang, 380 kDa
Motorprotein, das Vesikel auf Mikrotubuli zum Plus-Ende trägt: 8 nm je Schritt, ein ATP je Schritt.
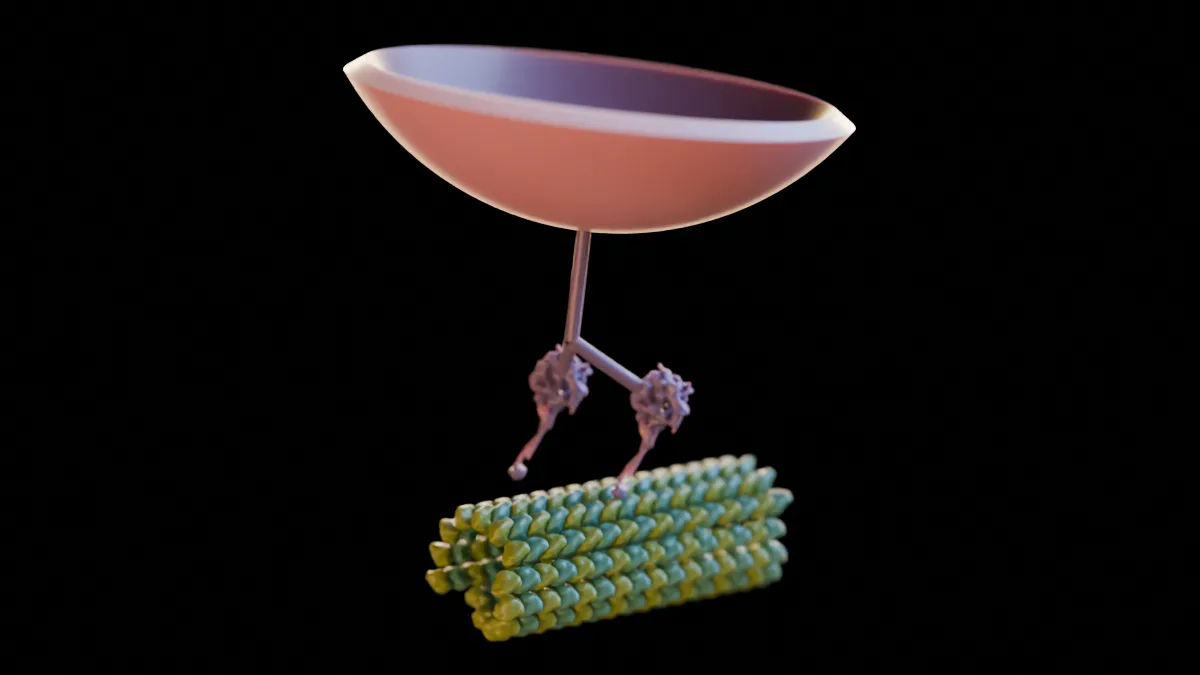
Zytoplasmatisches Dynein mit Fracht
Motorring ≈ 13 nm, mit Stiel 28 nm; ganzer Komplex ≈ 1,4 MDa
Motorprotein für den Transport zum Minus-Ende der Mikrotubuli, also zur Zellmitte.
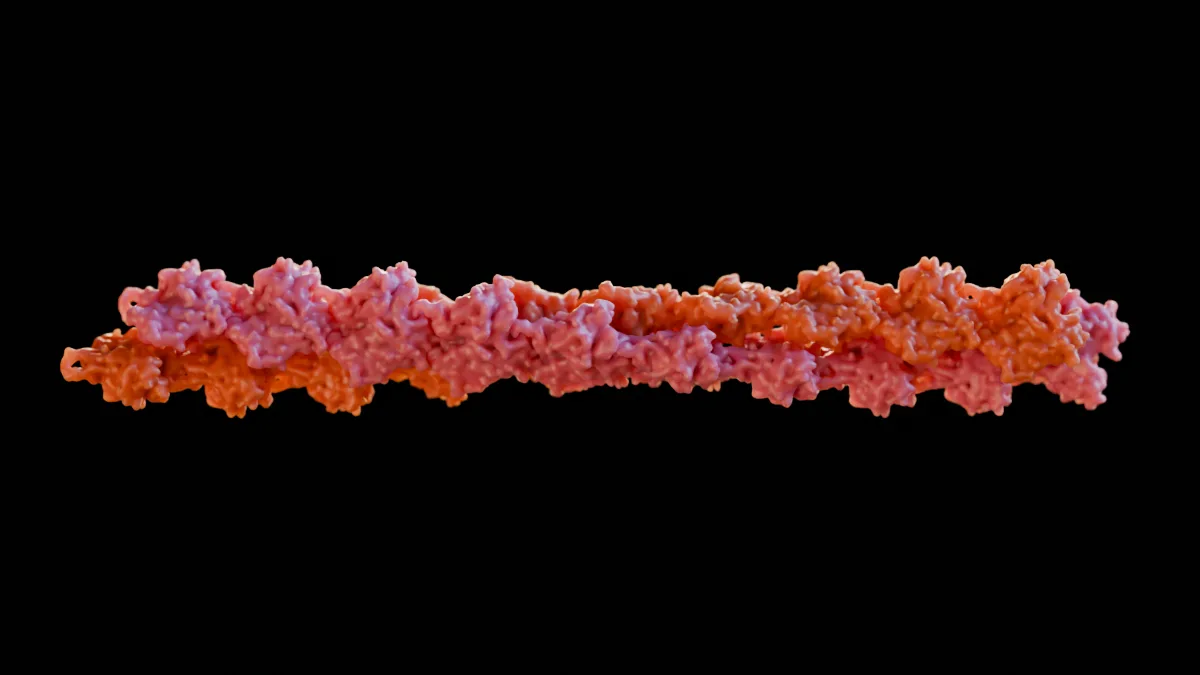
Aktinfilament
7 nm Durchmesser
Dünnstes Filament des Zytoskeletts; Kortex, Stressfasern, Zellbewegung.
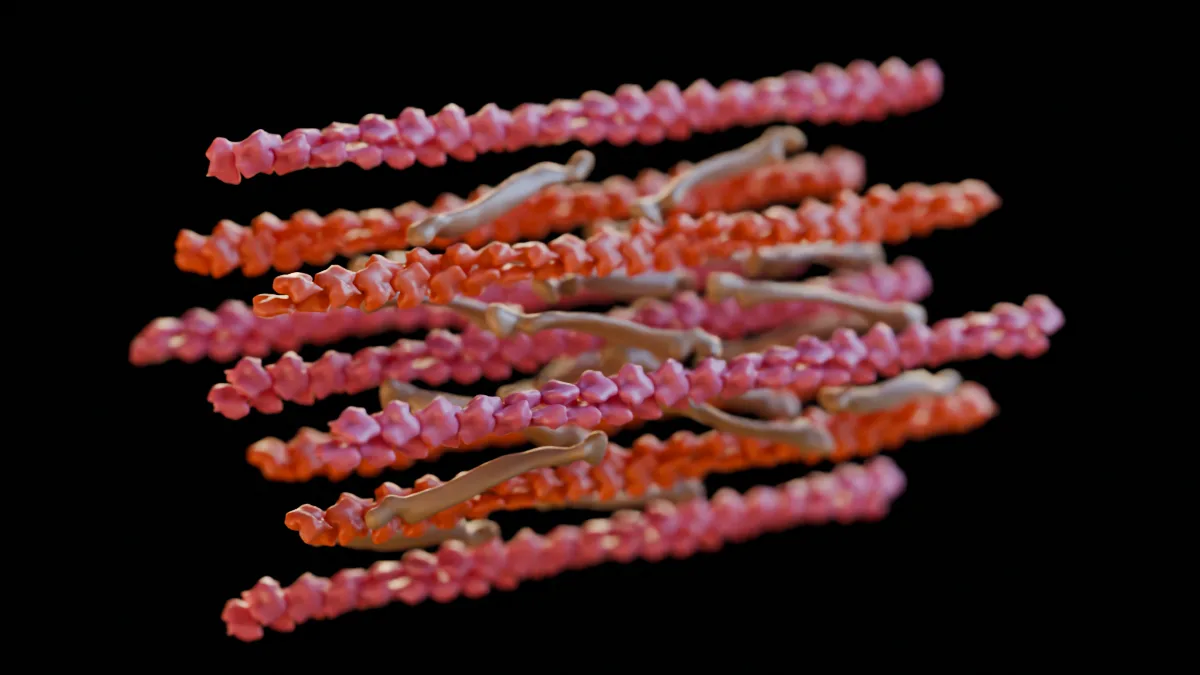
Stressfaser
0,1–0,5 µm dick, viele µm lang; im Modell 110 nm dick
Kontraktiles Bündel aus Aktinfilamenten, α-Aktinin und Myosin II, das zwischen Haftpunkten der Zelle gespannt ist.
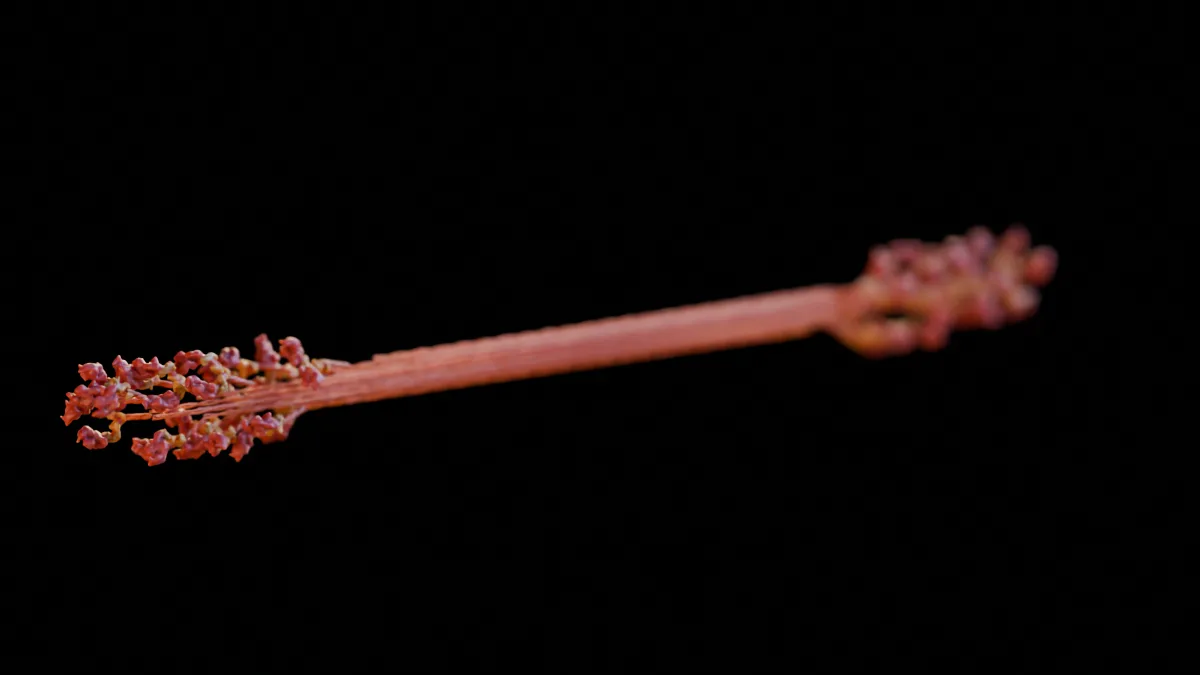
Myosin II (Minifilament)
≈ 300 nm lang, Schaft 10–15 nm dick; rund 30 Moleküle zu je ≈ 520 kDa
Bündel aus rund 30 Myosin-II-Molekülen mit Köpfen an beiden Enden; zieht gegenläufige Aktinfilamente zueinander.
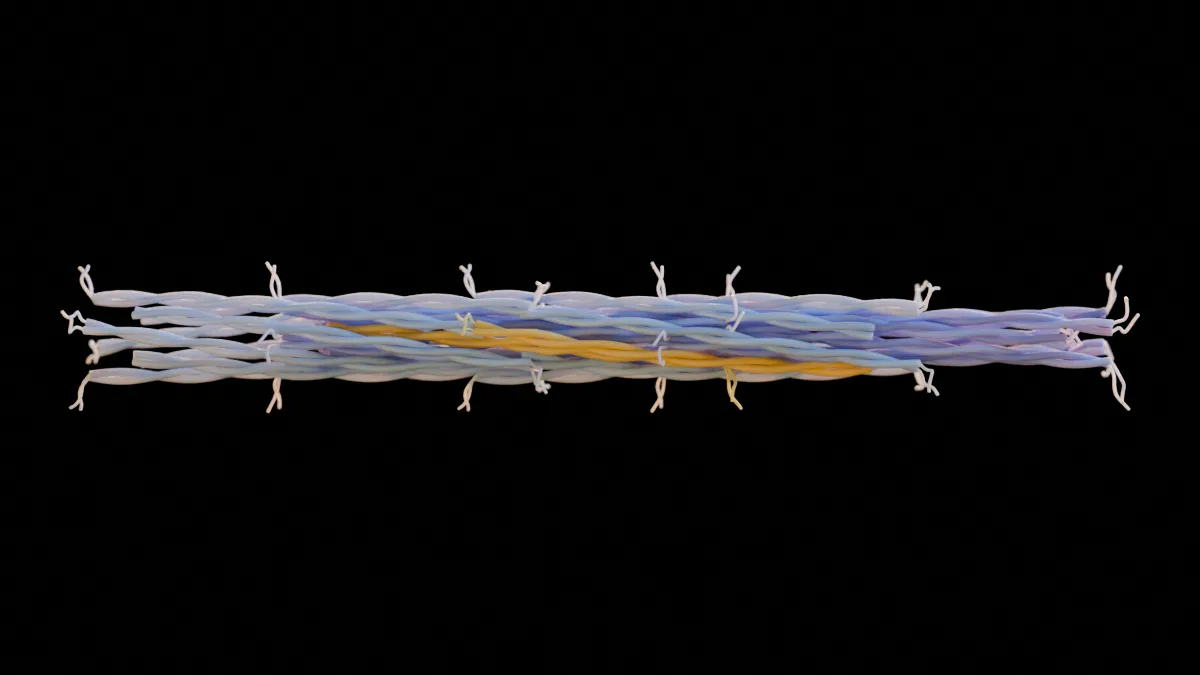
Intermediärfilament
10 nm Durchmesser
Zugfeste, seilartige Filamente, hier Vimentin.
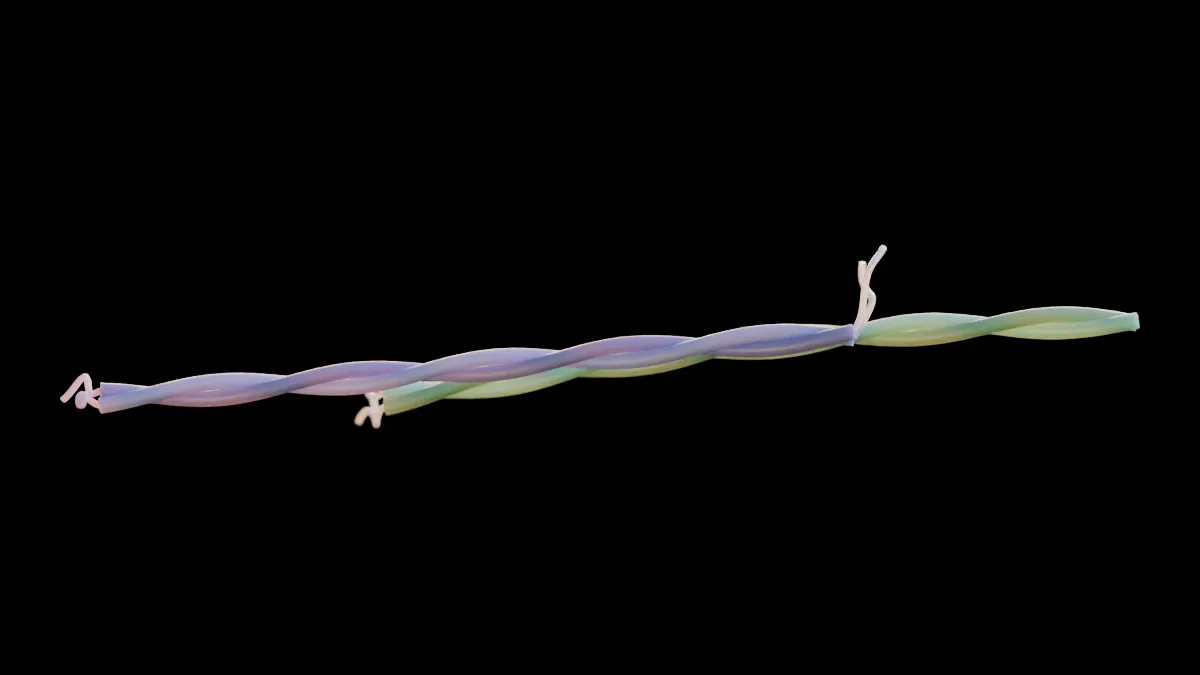
Vimentin (Dimer im Intermediärfilament)
Dimer ≈ 45 nm lang, 2 nm dick; Filament ≈ 10 nm Durchmesser
Stabförmiges Doppelwendel-Protein; rund 32 Ketten nebeneinander bilden das seilartige Intermediärfilament.
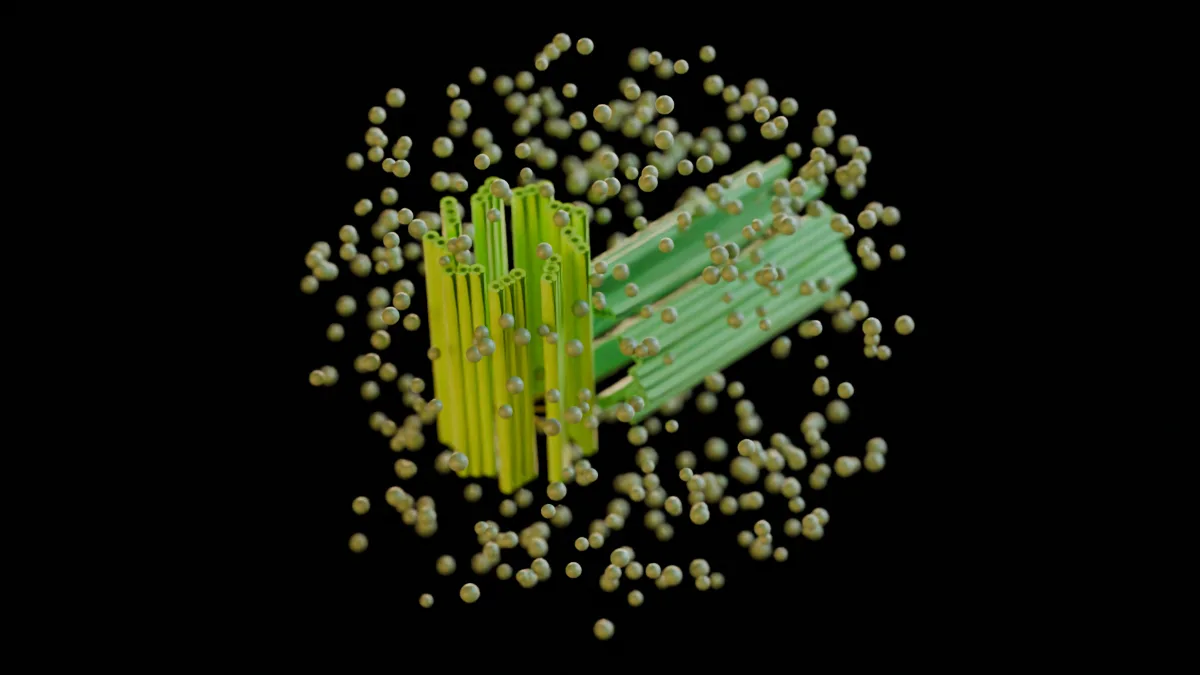
Zentrosom mit Zentriolen
Zentriol 250 nm × 450 nm
Organisationszentrum der Mikrotubuli; zwei Zentriolen im rechten Winkel.
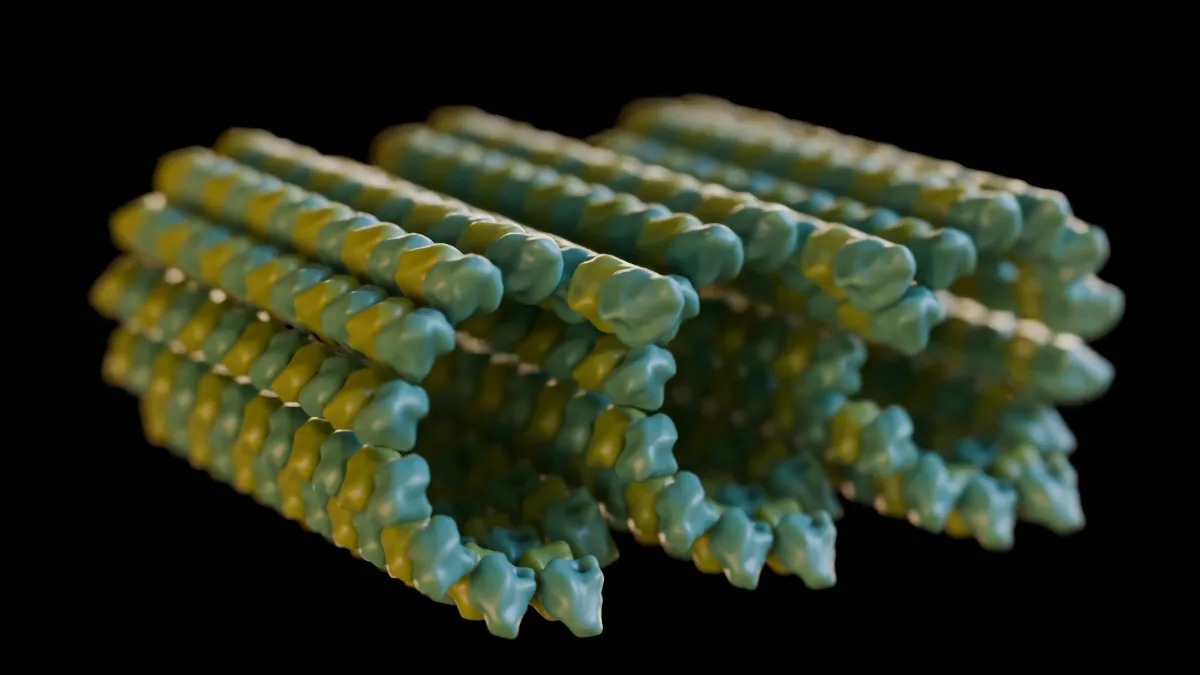
Tubulin im Zentriolen-Triplett
Triplett ≈ 25 nm × 65 nm im Querschnitt; Tubulin-Paar 8 nm lang
Drei verschmolzene Mikrotubuli (A, B, C) aus α- und β-Tubulin; neun solche Tripletts bilden die Wand des Zentriols.
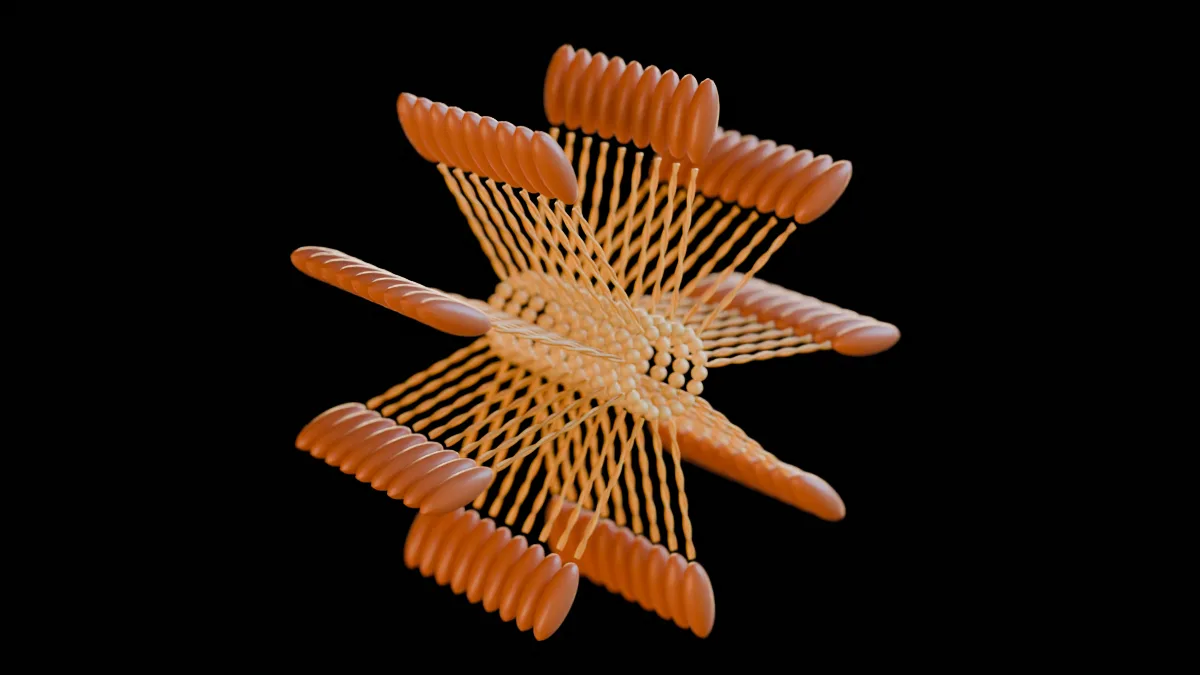
Wagenrad des Zentriols (SAS-6)
Nabe ≈ 22 nm Durchmesser, Speichen bis ≈ 75 nm Radius; Ringe im Abstand von ≈ 8,5 nm gestapelt
Gerüst aus dem Protein SAS-6, das dem entstehenden Zentriol die neunzählige Symmetrie vorgibt.
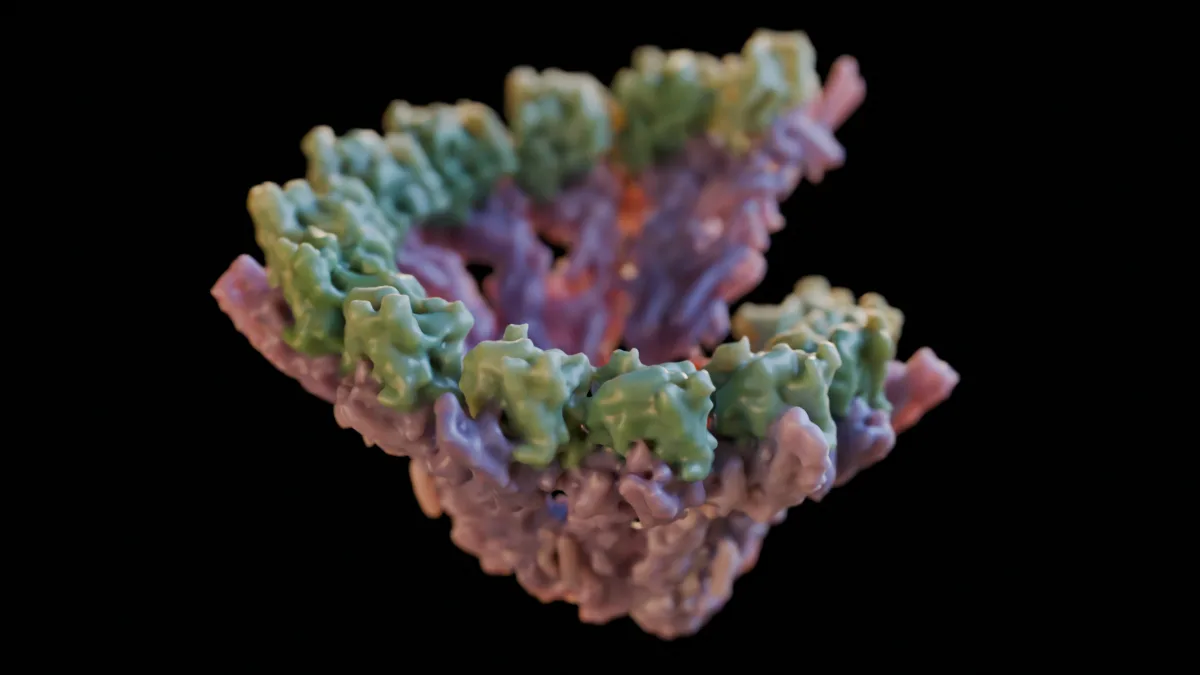
γ-Tubulin-Ringkomplex (γ-TuRC)
führt zu: γ-Tubulin-Ringkomplex (γ-TuRC)
Kegelförmiger Proteinkomplex, auf dem ein neuer Mikrotubulus zu wachsen beginnt.
Moleküle
α-Tubulin
≈ 4 nm, 50 kDa
Bildet mit β-Tubulin das Paar, aus dem Mikrotubuli wachsen. Das gebundene GTP wird hier nie gespalten.
β-Tubulin
≈ 4 nm, 50 kDa
Spaltet nach dem Einbau in den Mikrotubulus sein GTP – der Schalter für Wachsen und Schrumpfen. Bindestelle für Paclitaxel.
Kinesin-Motordomäne (frei, mit ADP)
≈ 7 nm, 36 kDa
Einzelner Motorkopf des Kinesin-1, wie er frei im Zytosol vorliegt.
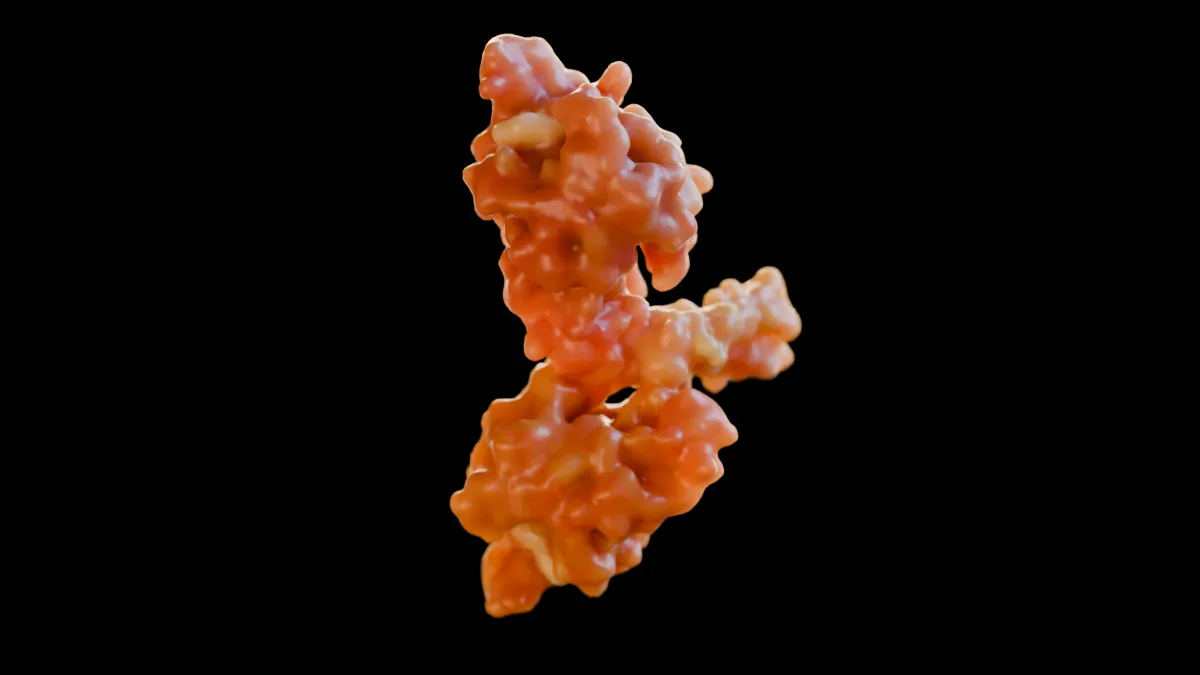
Kinesin-1-Dimer (zwei Köpfe mit Hals-Coiled-Coil)
≈ 12 nm, 81 kDa (Aminosäuren 2–370 von 963)
Zwei Motorköpfe, verbunden über den Anfang des Stiels.
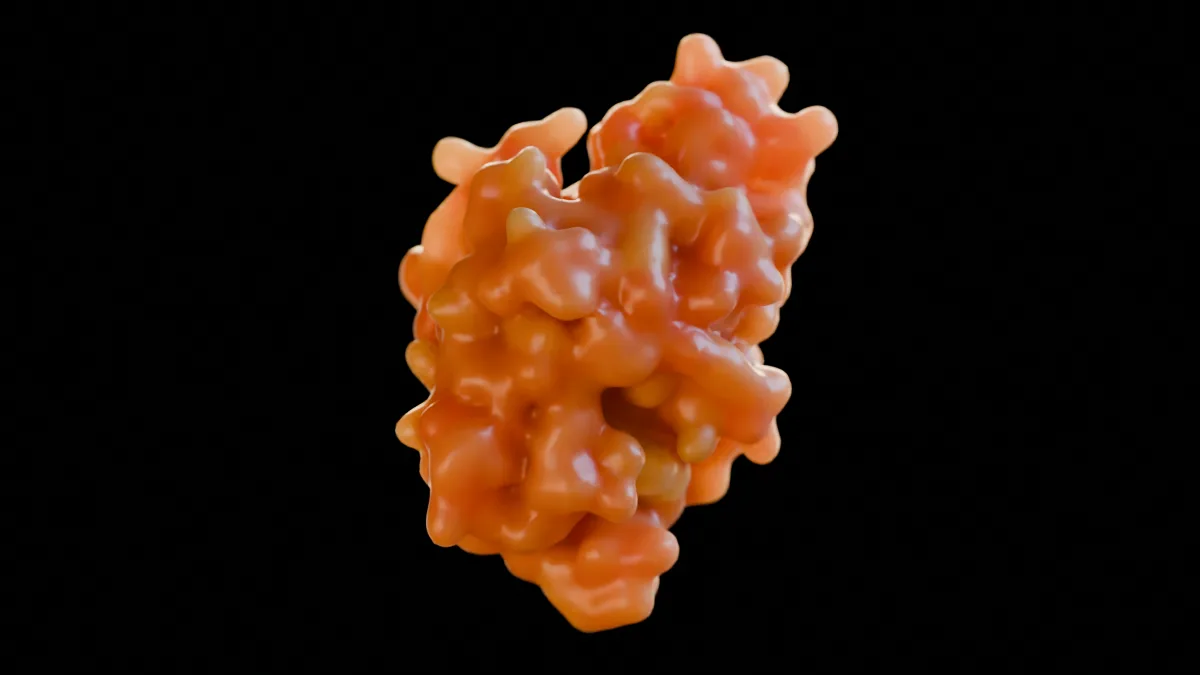
Kinesin-1-Motordomäne (an Tubulin gebunden)
≈ 7 × 5 × 5 nm, 37 kDa
Motorkopf von Kinesin-1 in der Haltung, in der er auf dem Mikrotubulus sitzt.
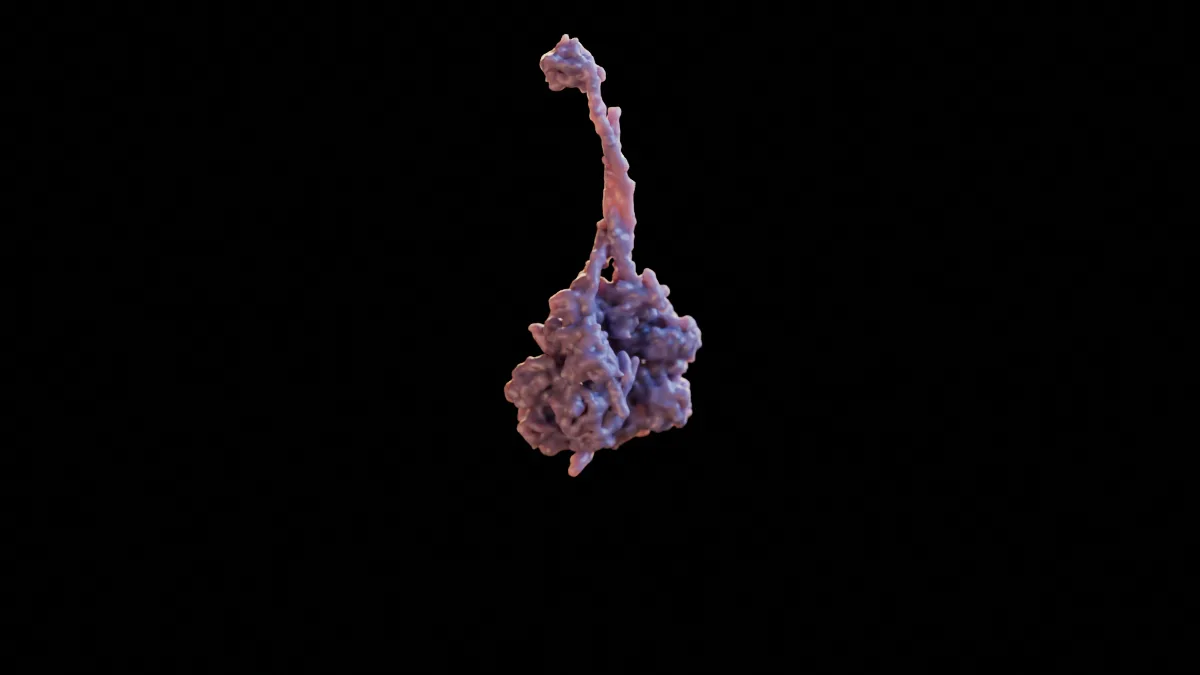
Dynein-Motordomäne
Ring ≈ 13 nm, mit Stiel 28 nm; 332 kDa
Ring aus sechs AAA+-Domänen mit Stiel und Hebel – der Motor des Dyneins.
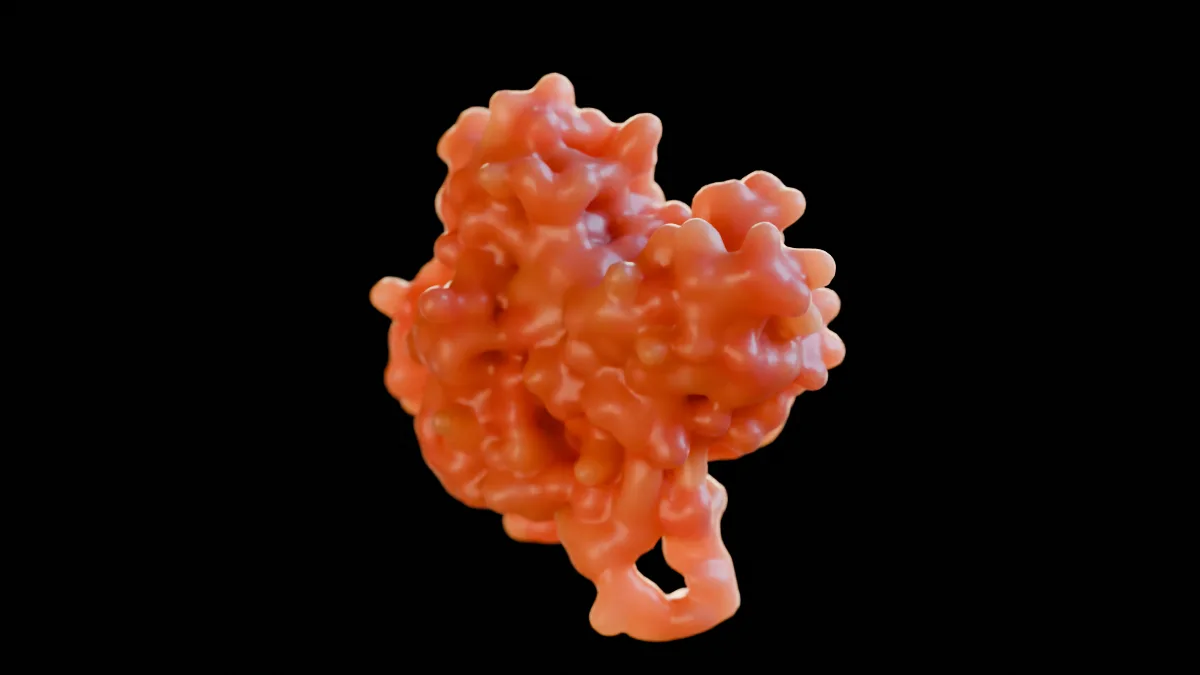
Aktin (Monomer)
≈ 5,5 nm, 42 kDa
Baustein der Aktinfilamente. Etwa die Hälfte des Aktins liegt als freies, ATP-beladenes Monomer im Zytosol bereit.
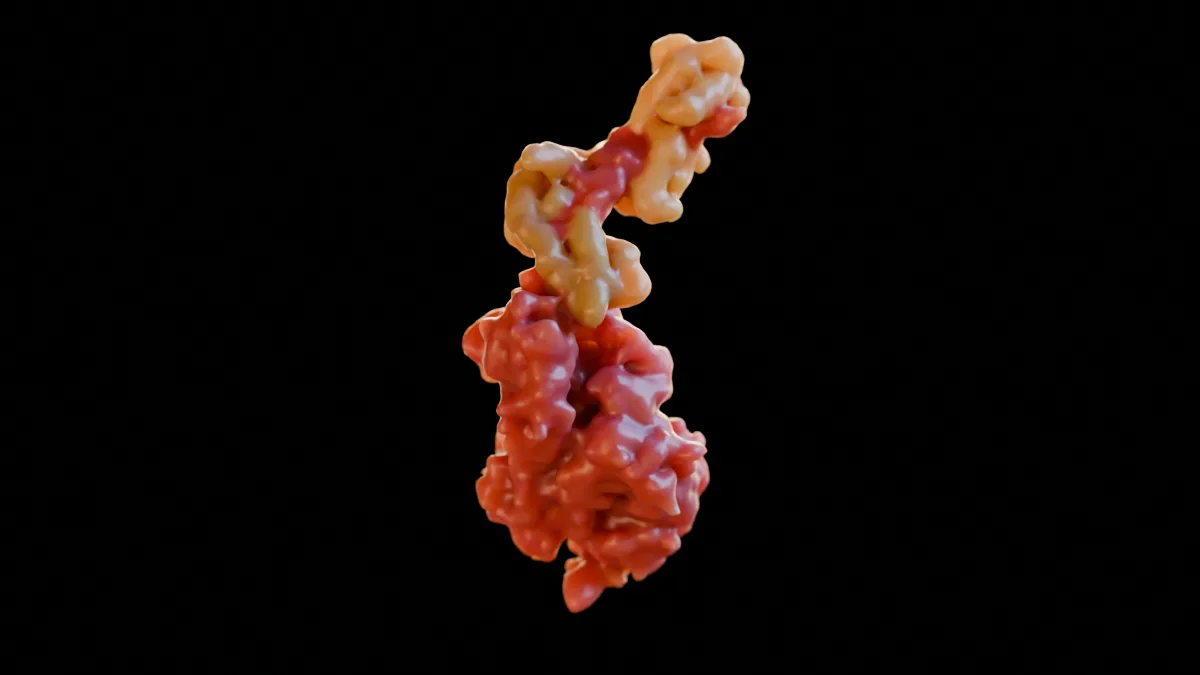
Myosin II: Subfragment 1 (Kopf mit Hebelarm)
≈ 16,5 nm lang, ≈ 130 kDa mit beiden leichten Ketten
Myosinkopf mit Hebelarm und den beiden leichten Ketten.
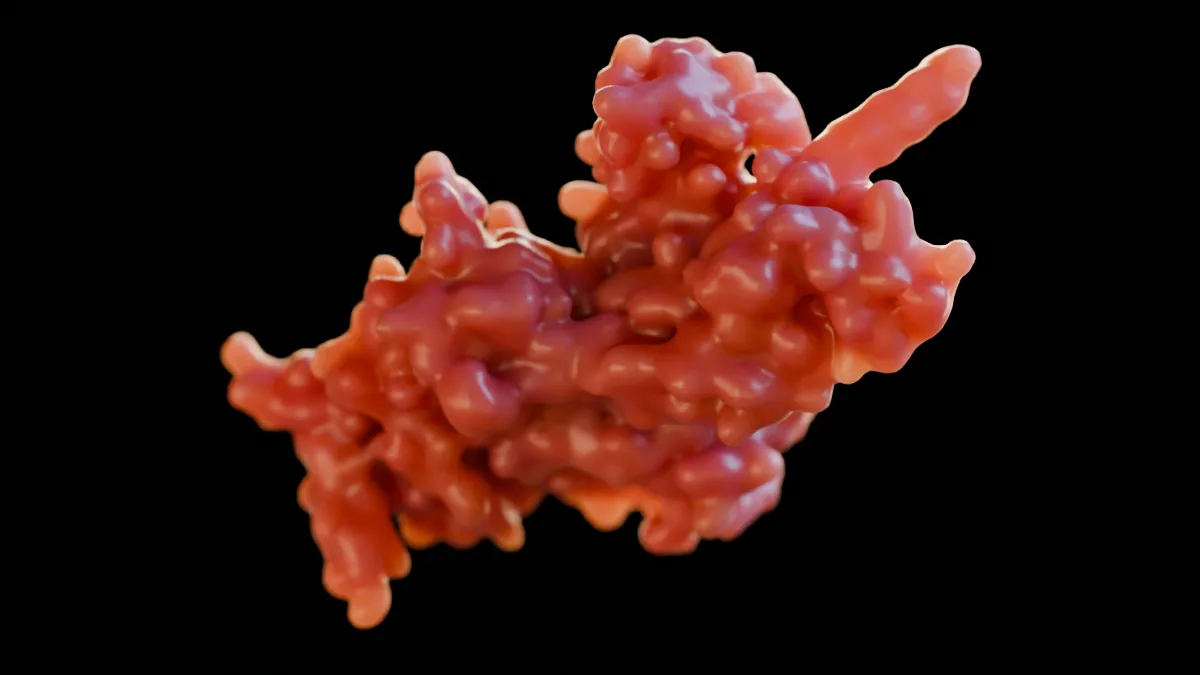
Myosin-Motordomäne (an F-Aktin gebunden)
≈ 9 nm, 83 kDa
Motorkopf von Myosin II im Rigor-Zustand, fest an Aktin gebunden.
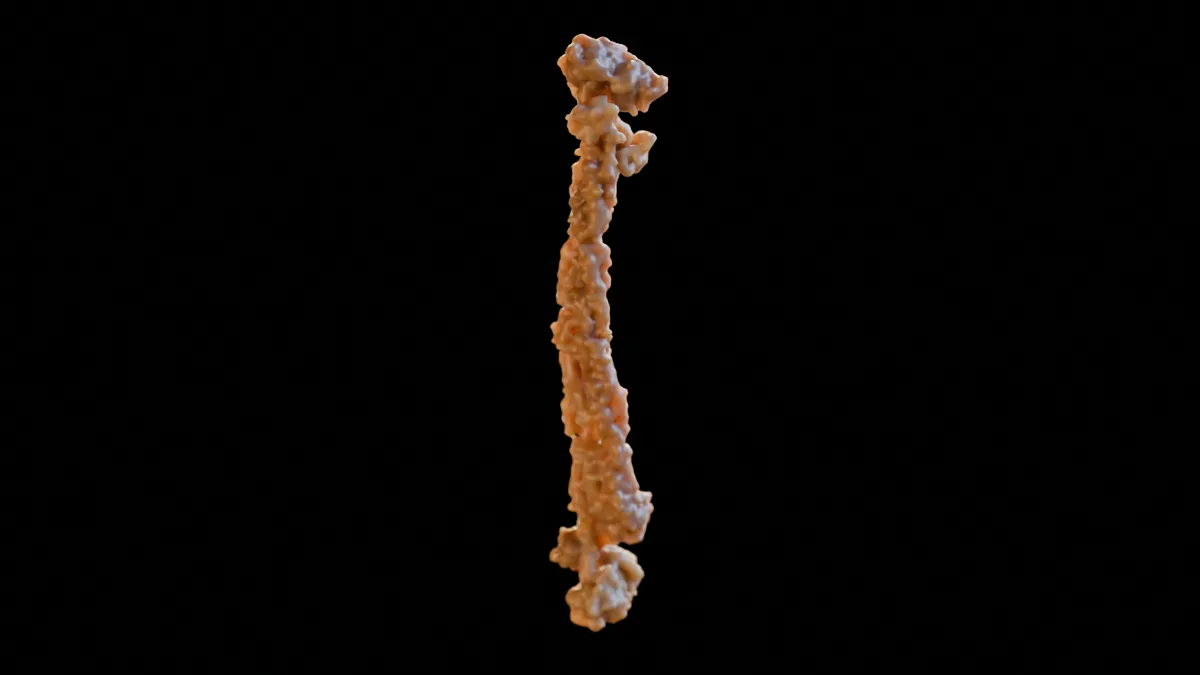
α-Aktinin (Dimer)
≈ 36 nm lang, 2 × 10⁴ kDa
Stabförmiger Vernetzer, der Aktinfilamente zu Bündeln verbindet.
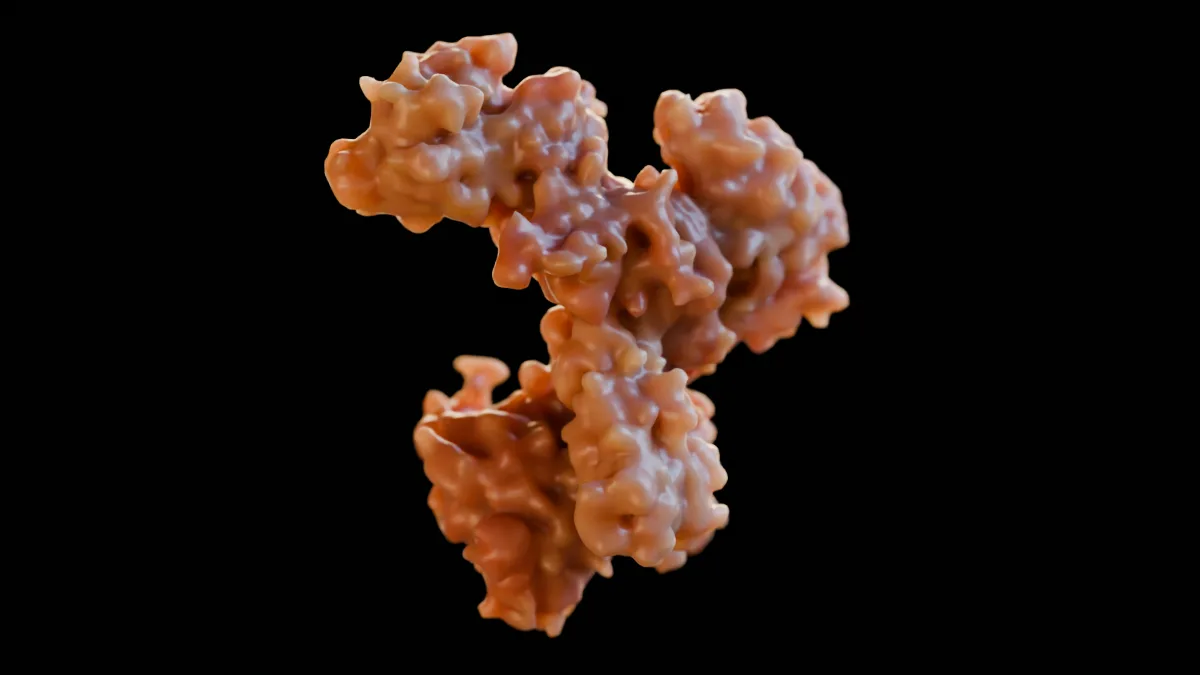
Arp2/3-Komplex
≈ 13 nm, 7 Untereinheiten, 224 kDa
Startet neue Aktinfilamente als Seitenzweige bestehender Filamente.
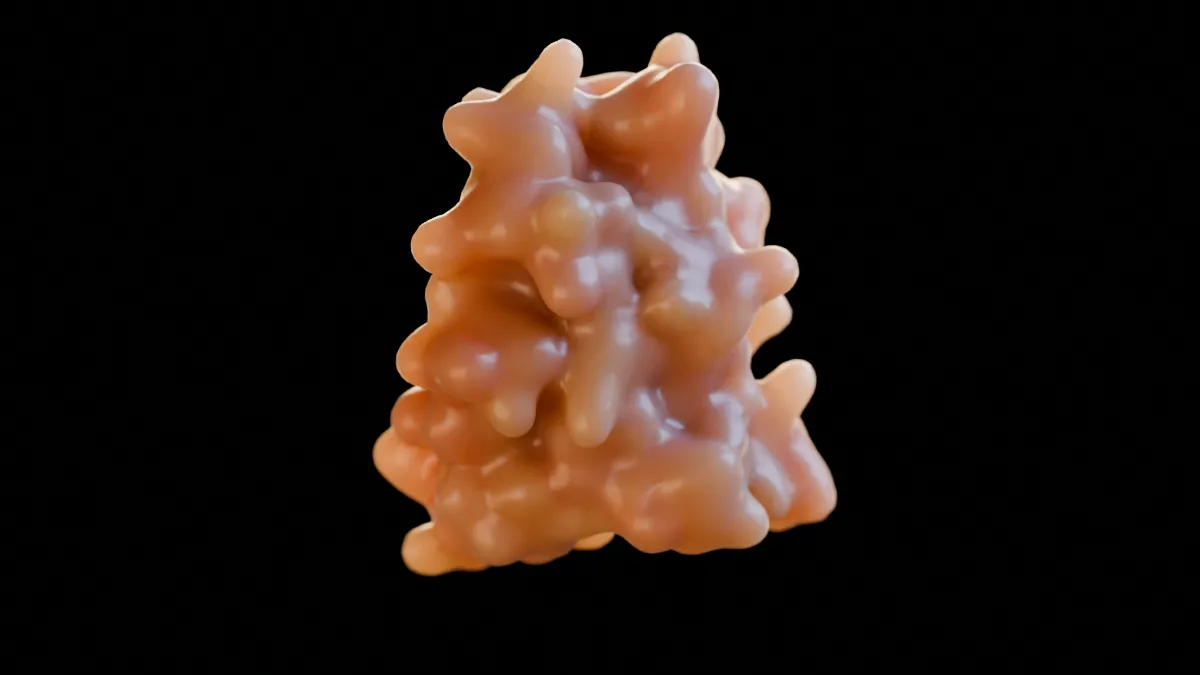
Cofilin-1
≈ 4 nm, 18 kDa
Zerlegt ältere Aktinfilamente und setzt so Bausteine für neues Wachstum frei.
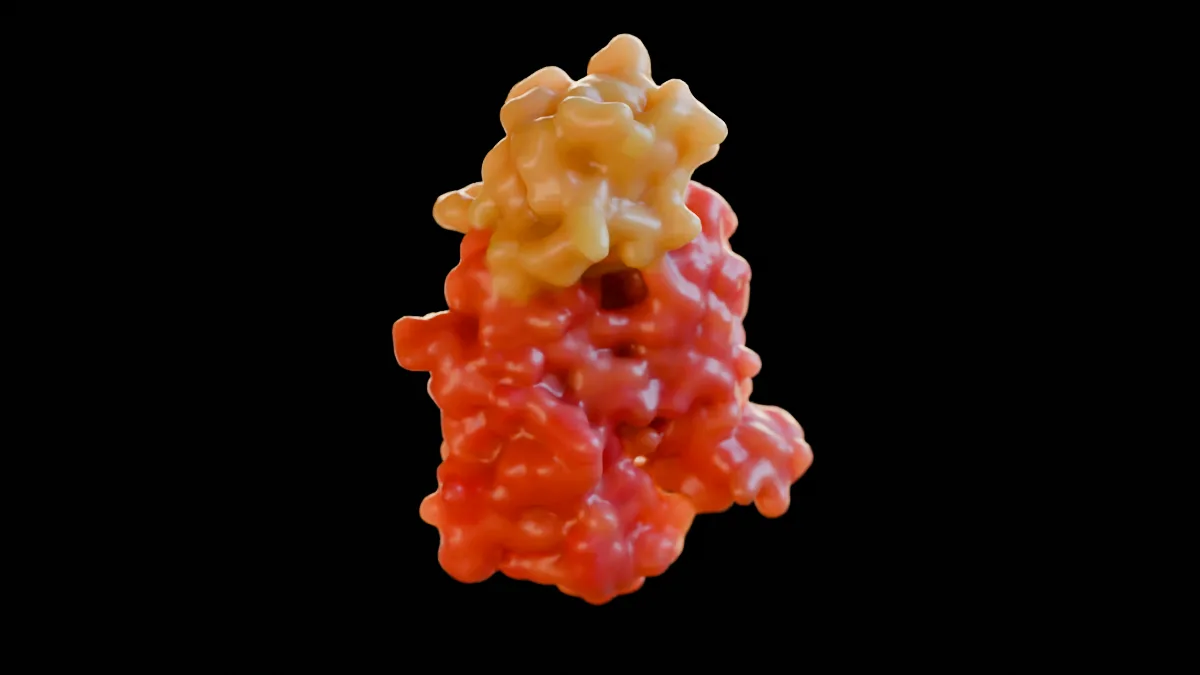
Profilin–Aktin-Komplex
≈ 9 nm, 57 kDa (Aktin 42 + Profilin 15 kDa)
Aktin-Monomer mit seinem Begleiter Profilin – der Nachschub für wachsende Filamente.
γ-Tubulin-Ringkomplex (γ-TuRC)
≈ 30 nm, ≈ 2,2 MDa
Schablone am Zentrosom, an der Mikrotubuli beginnen.
Zellkern
das Erbgut, umgeben von der doppelten Kernhülle
Bauteile
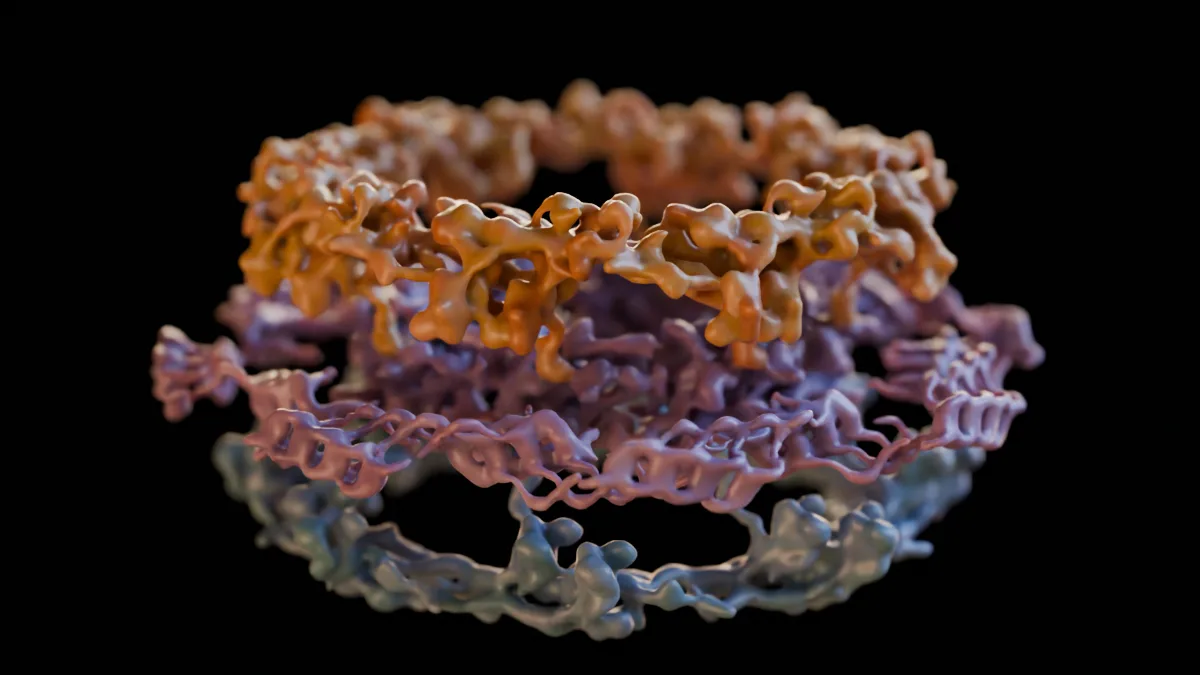
Kernporenkomplex
≈ 120 nm Außendurchmesser, Kanal ≈ 40 nm
Achtstrahliger Proteinring, der den Verkehr zwischen Kern und Zytoplasma regelt.
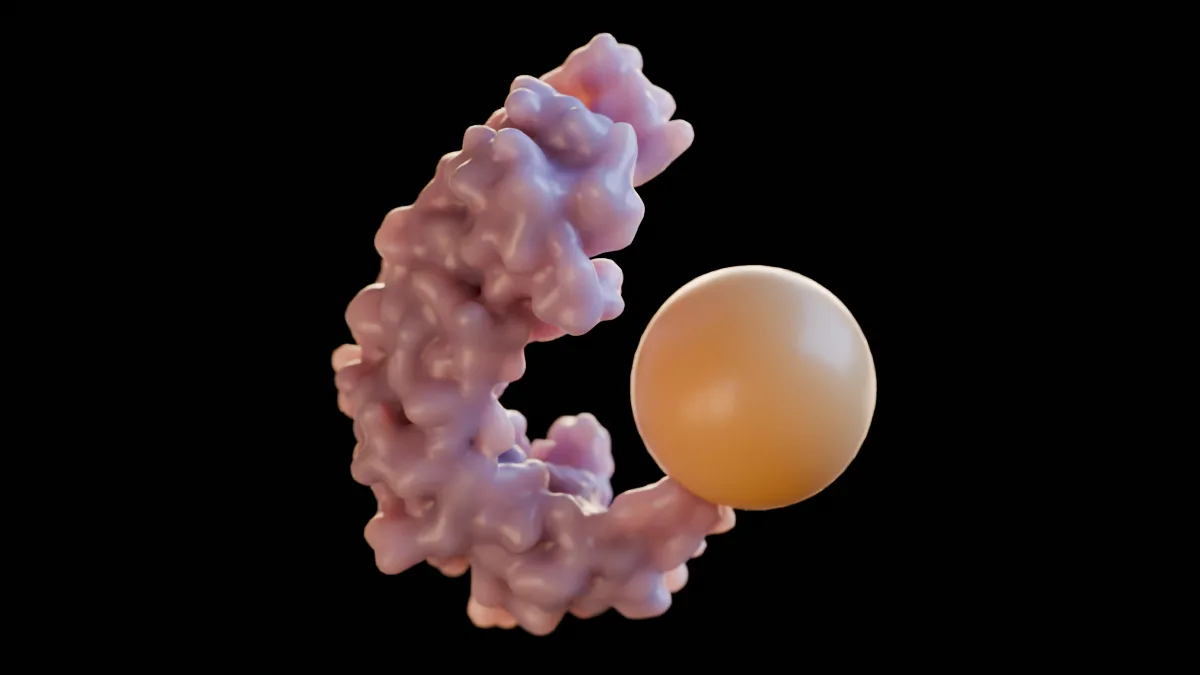
Importkomplex (Importin-β mit Fracht)
Importin-β ≈ 97 kDa, im Modell der N-terminale Teil (≈ 10 × 7 nm); Fracht hier ≈ 4 nm
Transportrezeptor, der ein Protein mit Kernlokalisierungssignal durch die Kernpore in den Zellkern bringt.
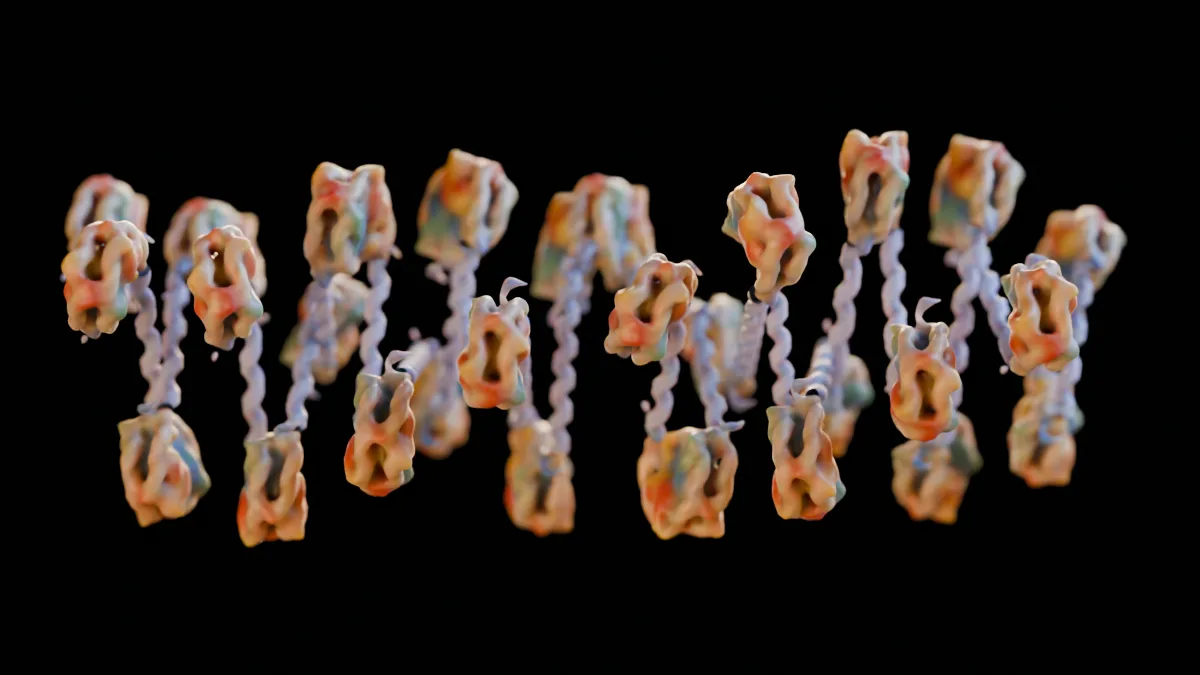
Chromatin
DNA 2 nm, Nukleosom ≈ 10 nm, Faserbündel 100–200 nm
DNA, um Histone gewickelt; jedes Chromosom belegt im Kern ein eigenes Territorium.
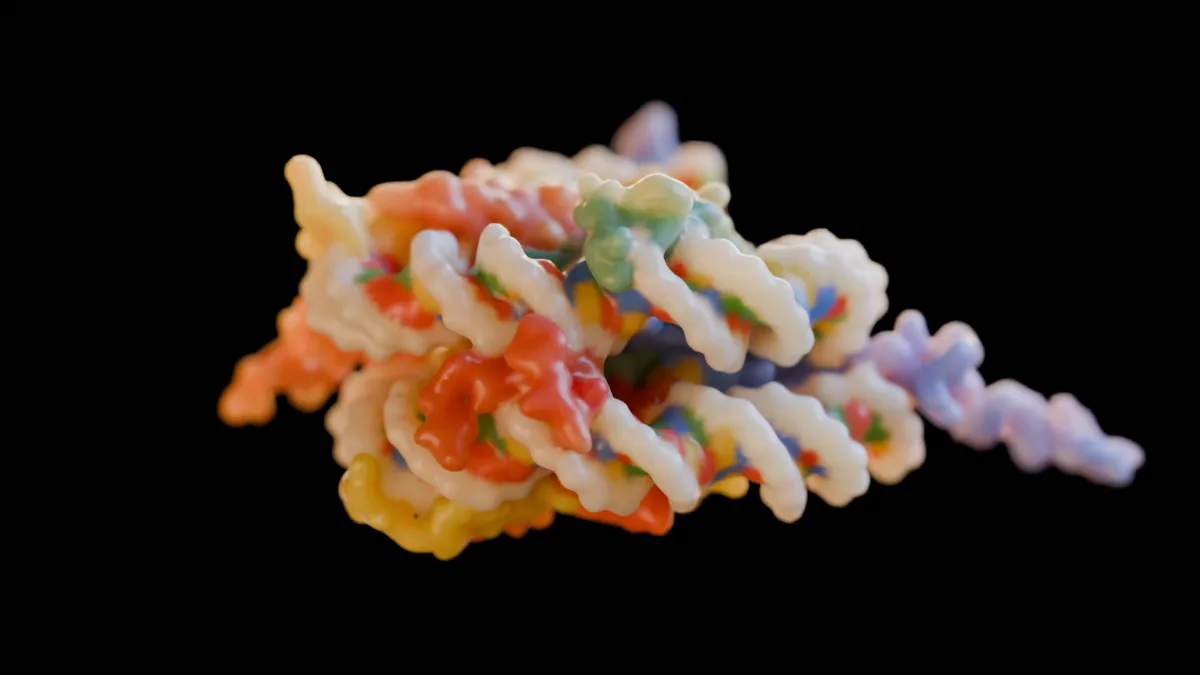
Nukleosom
≈ 11 nm Durchmesser, 5,5 nm hoch
147 Basenpaare DNA, 1,65-mal um acht Histone gewickelt.
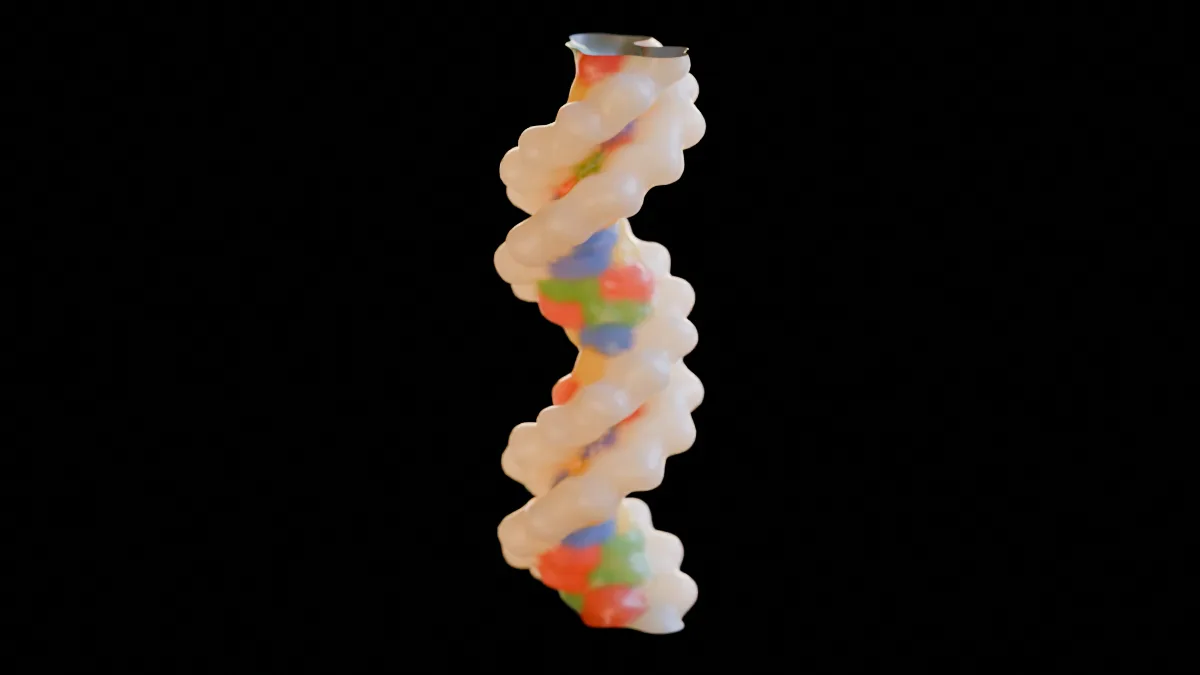
DNA-Doppelhelix
2 nm Durchmesser, 0,34 nm je Basenpaar
Zwei gegenläufige Stränge, verbunden über die Basenpaare A–T und G–C.
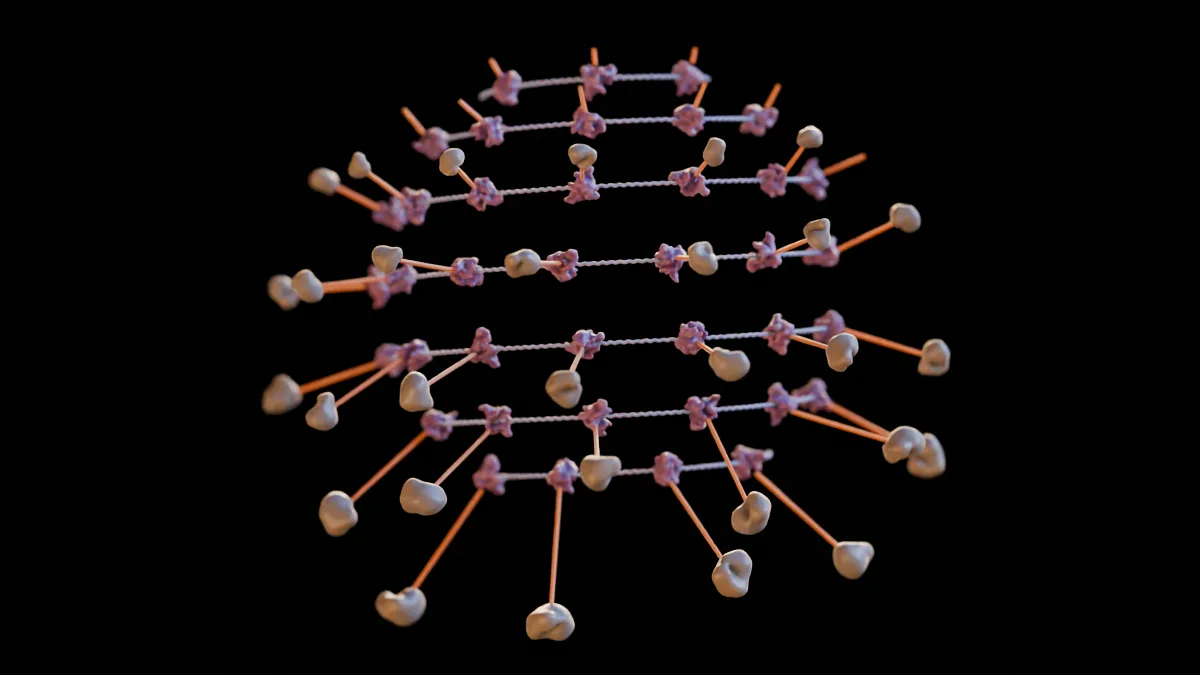
rDNA (rRNA-Gen)
2 nm dick; ein Gen ≈ 13 kb ≈ 4,5 µm, im Atlas rund 10 kb gezeigt
DNA-Abschnitt mit dem Bauplan der ribosomalen RNA, dicht besetzt mit RNA-Polymerase I.
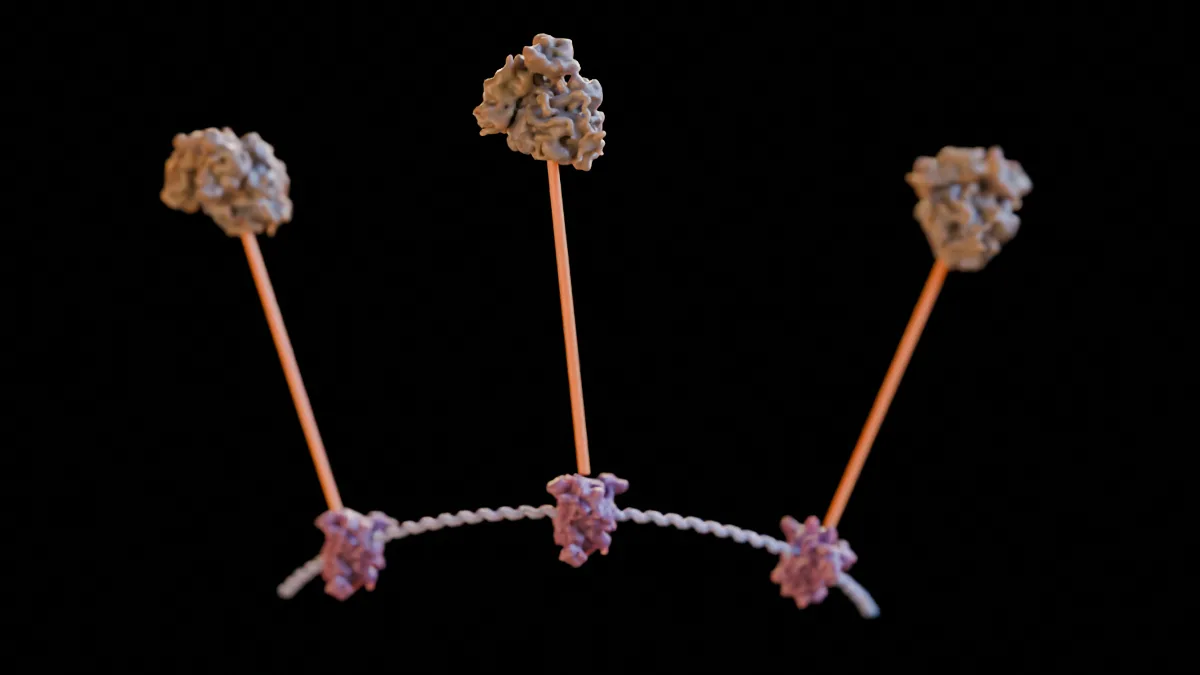
Wachsende prä-rRNA
fertig 13 000 Nukleotide; im Atlas als 6–55 nm langer Faden
RNA-Faden, der aus einer RNA-Polymerase I herauswächst – zum Ende des Gens hin immer länger.
Prä-Ribosom (Platzhalter)
führt zu: Ribosom
Unfertige Ribosomen-Untereinheit im Nukleolus. Gezeigt ist ersatzweise ein verkleinertes fertiges 80S-Ribosom.
Moleküle
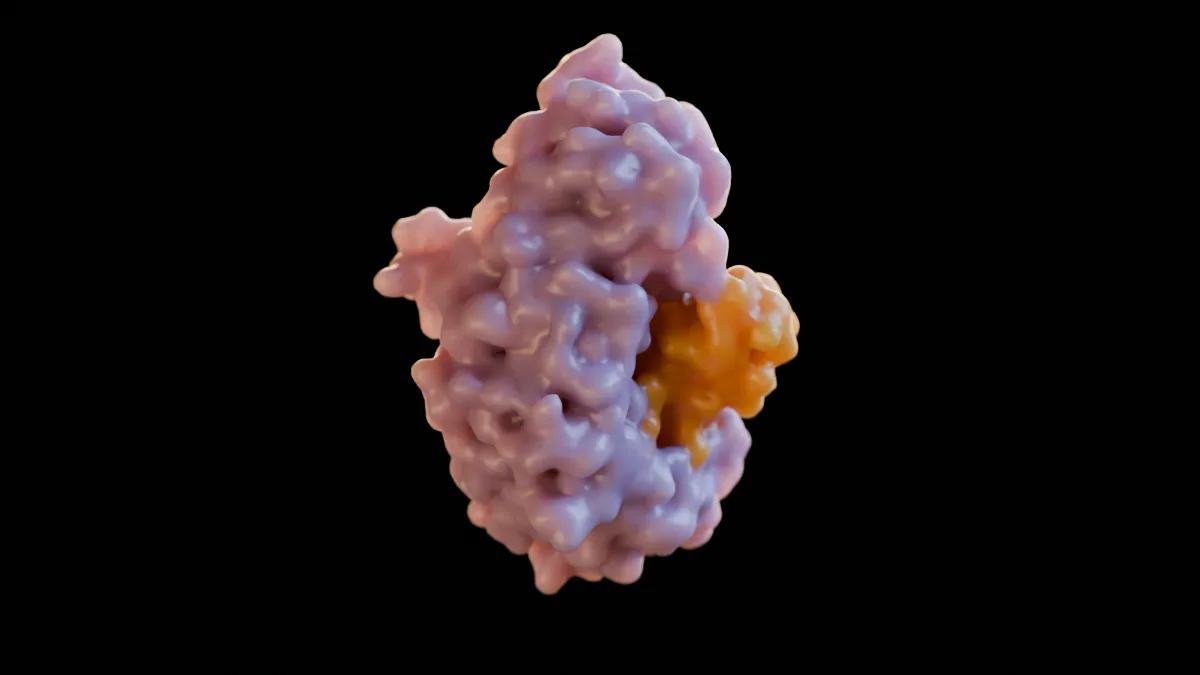
Importin-β mit RanGTP
≈ 10 nm; Importin-β ganz 97 kDa, Ran 24 kDa
Transportrezeptor des Kernimports, hier nach der Ankunft im Kern.
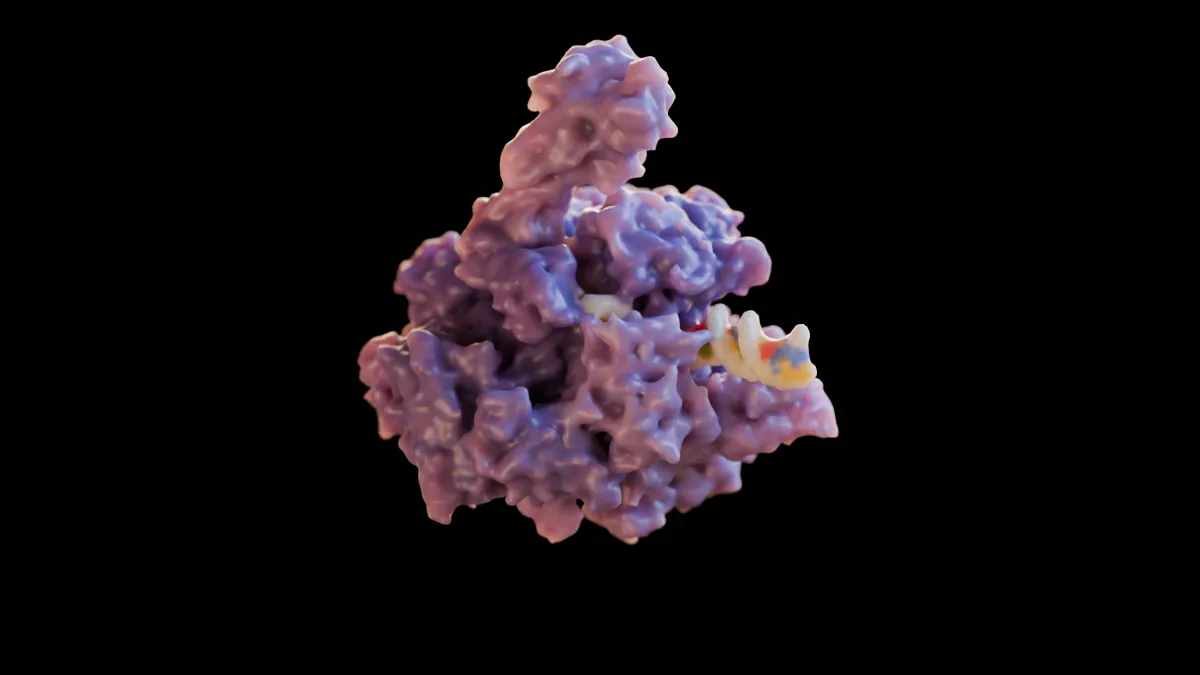
RNA-Polymerase II
≈ 15 nm, 12 Untereinheiten
Schreibt Gene in Boten-RNA um. Im Modell mit DNA und entstehender RNA im aktiven Zentrum.
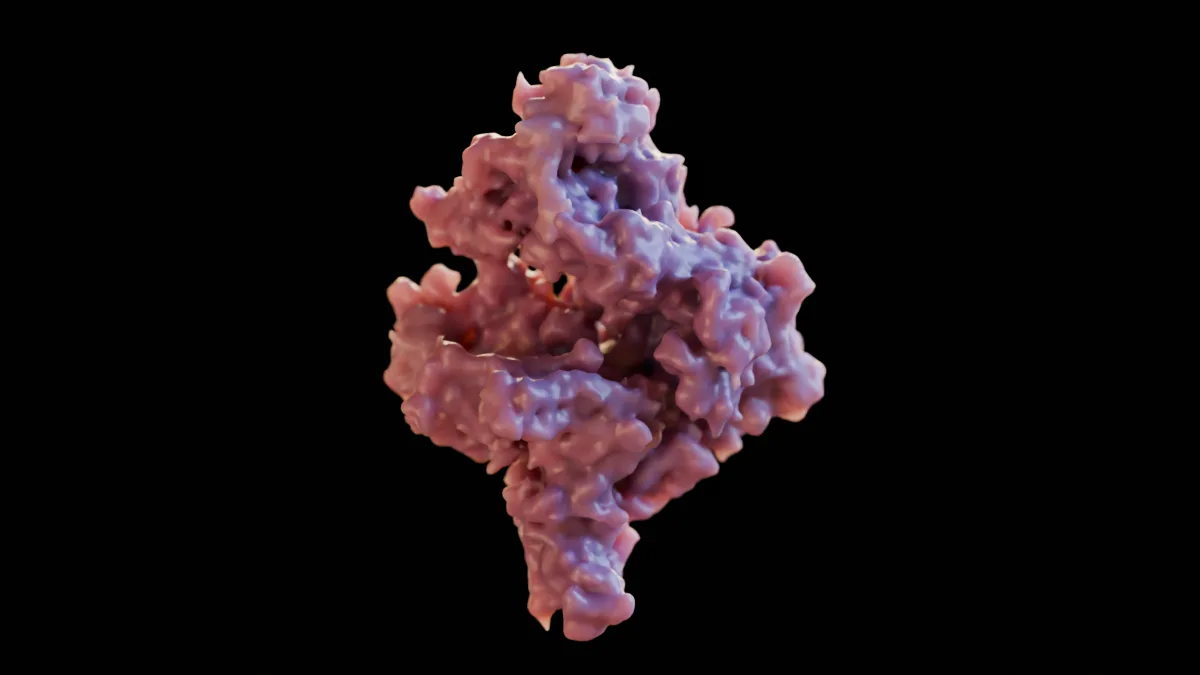
RNA-Polymerase I
≈ 18 nm, 14 Untereinheiten, 590 kDa
Schreibt im Nukleolus die Gene der ribosomalen RNA ab.
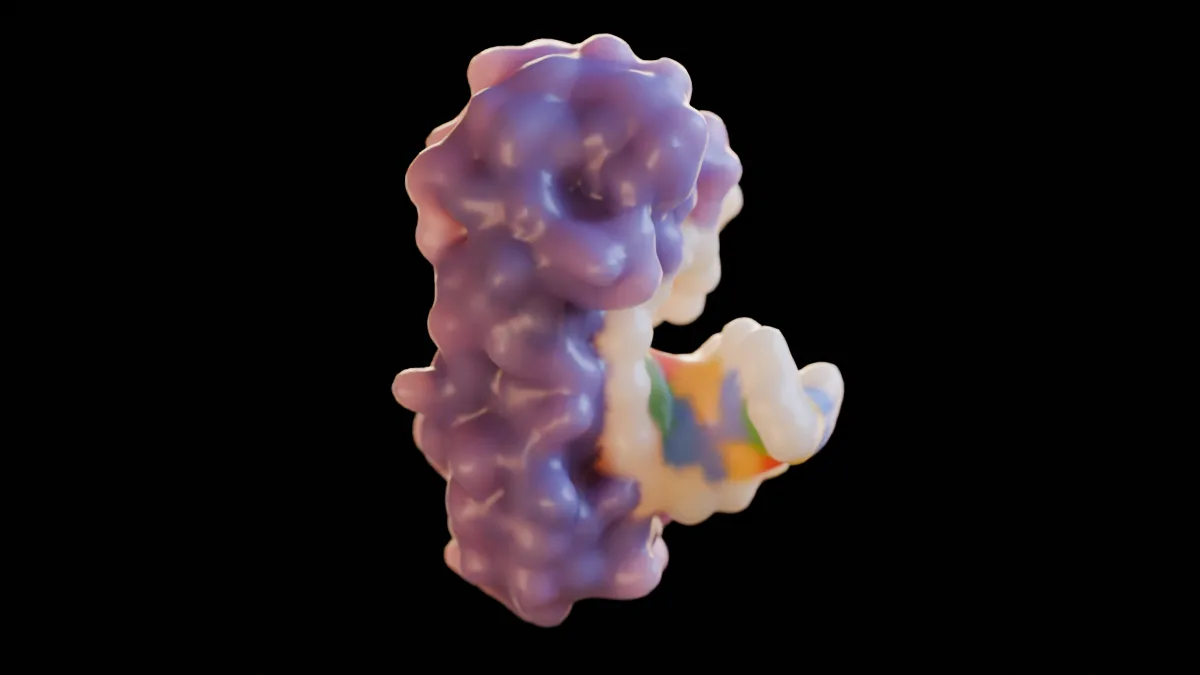
TATA-Box-Bindeprotein an DNA
≈ 6,5 nm; ganzes TBP 38 kDa
Sattelförmiges Protein, das den Startpunkt der Transkription markiert.
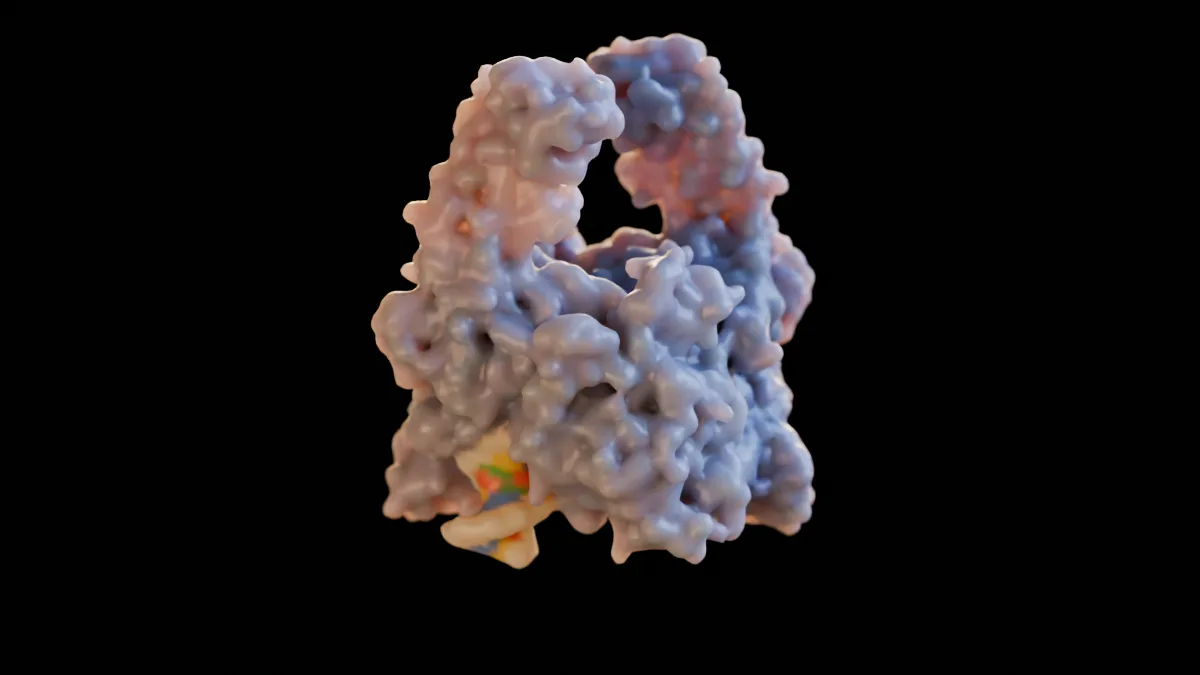
Topoisomerase IIα an DNA
≈ 11 nm (Kern des Enzyms); ganzes Dimer 2 × 174 kDa
Entwirrt DNA, indem sie eine Doppelhelix durch eine zweite hindurchführt.
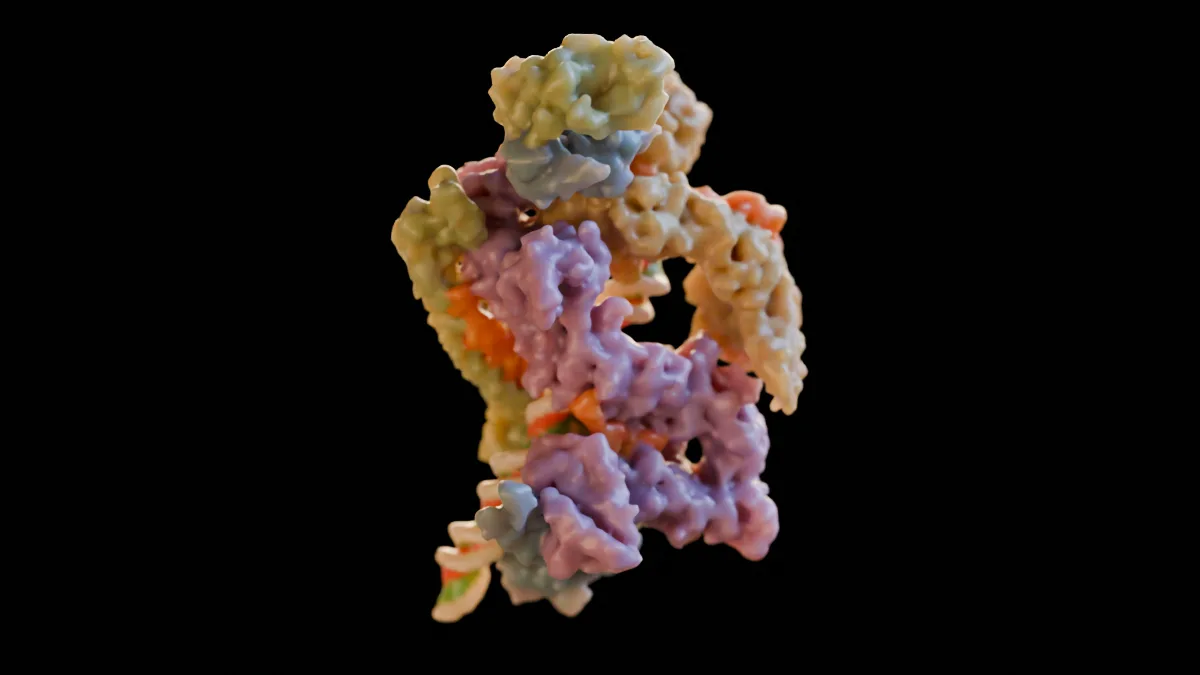
Cohesin mit NIPBL an DNA (Kopfmodul)
≈ 21 nm (Kopfmodul); ganzer Ring ≈ 50 nm
Ringkomplex, der Schwesterchromatiden zusammenhält und DNA-Schleifen bildet.
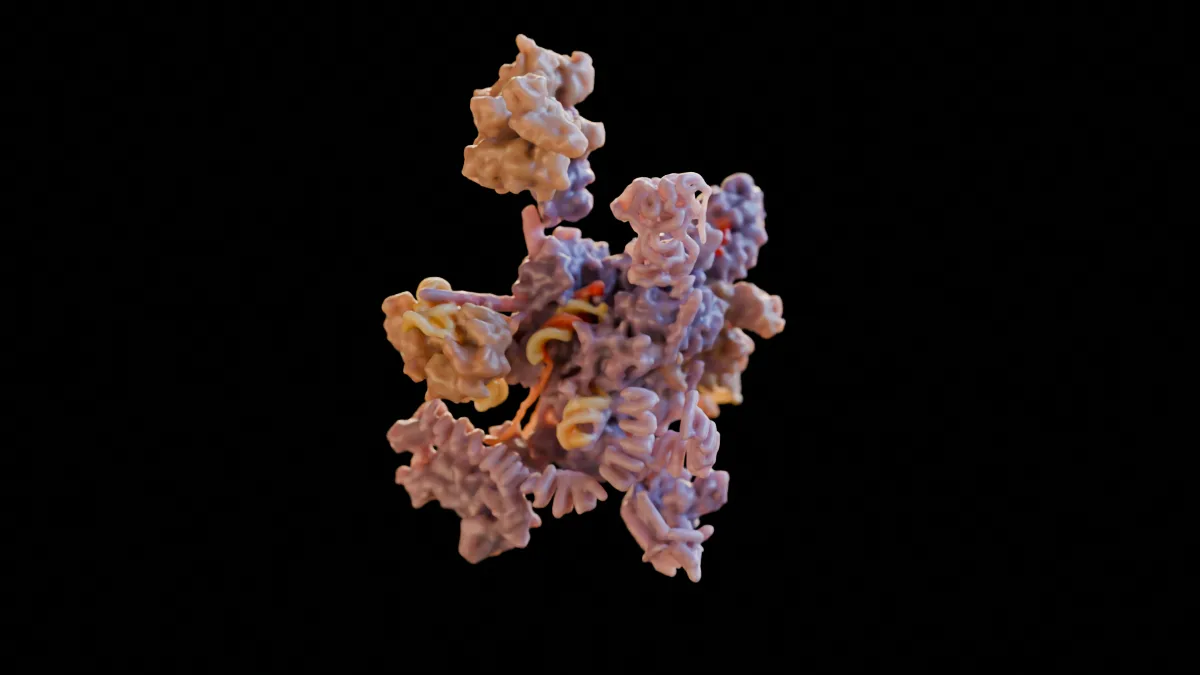
Spleißosom (C*-Komplex)
≈ 35 nm, über 40 Proteine und 3 snRNAs
Schneidet die Introns aus der Vorläufer-mRNA und verknüpft die Exons.
Endoplasmatisches Retikulum
Membranstapel und Röhren rund um den Kern
Moleküle
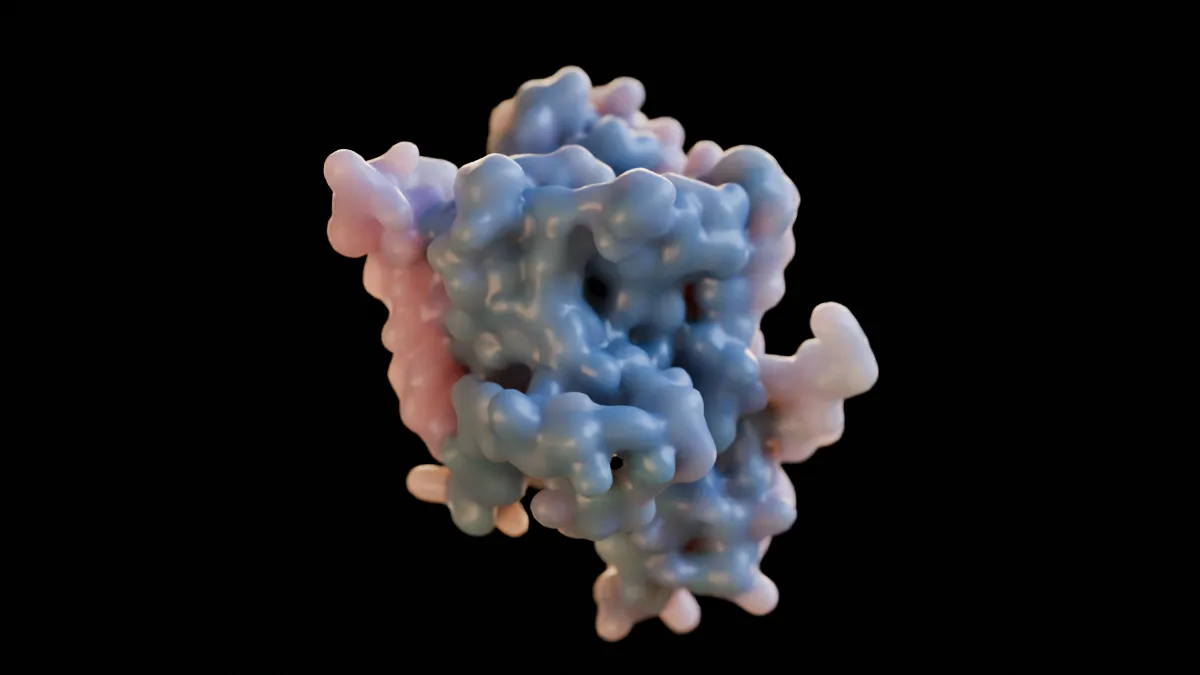
Sec61-Translokon
≈ 8 nm, 57 kDa (α, β, γ)
Proteinkanal der ER-Membran, durch den das Ribosom neue Proteine einfädelt.
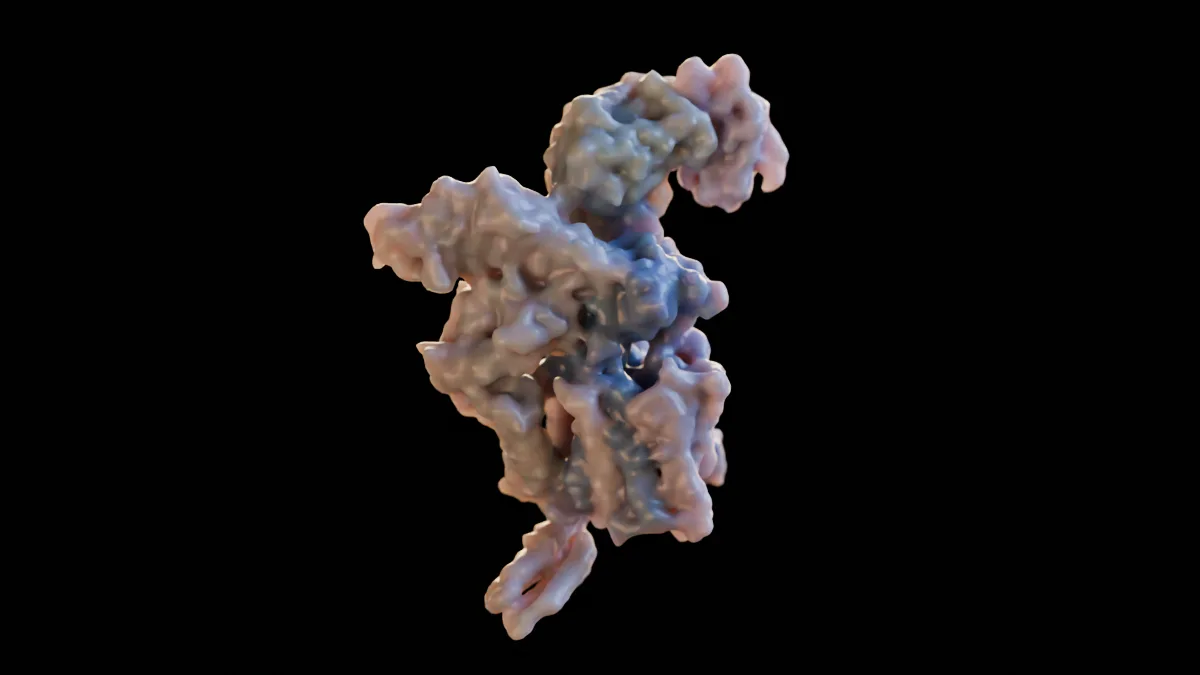
Oligosaccharyltransferase (OST-A)
≈ 17 nm, 8 Untereinheiten, ≈ 280 kDa
Hängt den Zuckerbaum an neu entstehende Proteine – die N-Glykosylierung.
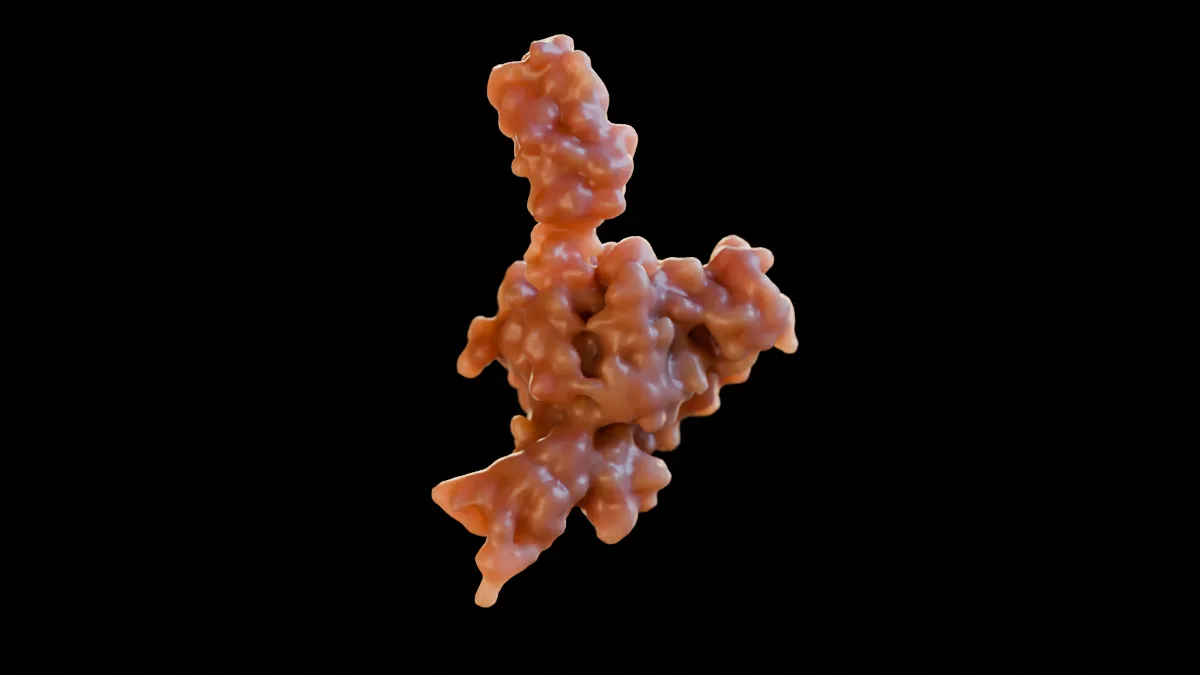
BiP (Hsp70 des ER)
≈ 11 nm, 72 kDa
Häufigstes Chaperon im ER: hält ungefaltete Proteine fest, bis sie ihre Form finden.
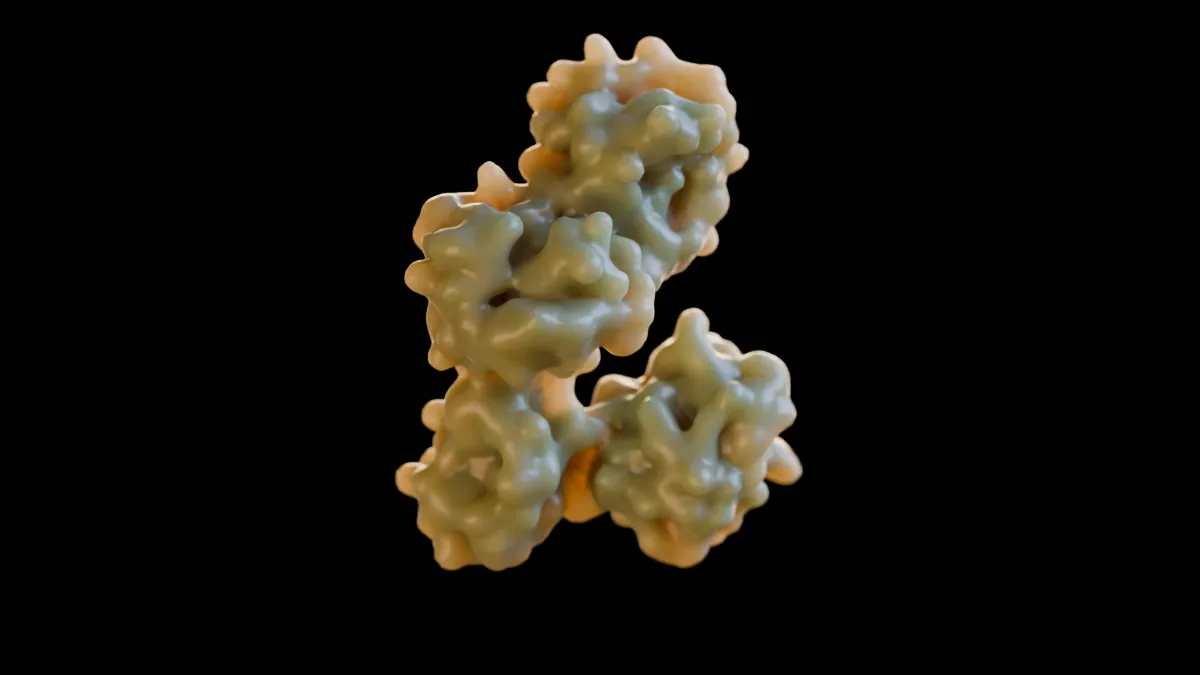
Protein-Disulfid-Isomerase (PDI)
≈ 9 nm, 57 kDa
Knüpft und korrigiert Disulfidbrücken neu gebildeter Proteine im ER.
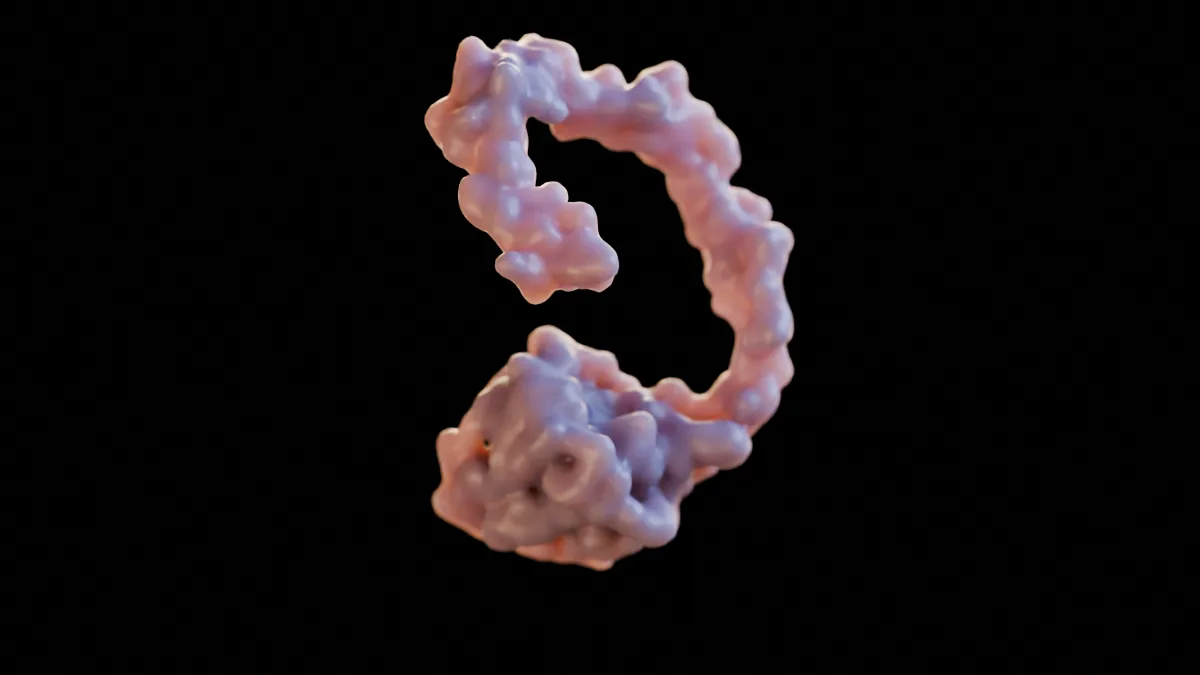
Calnexin (luminale Domäne)
≈ 10 nm, Arm ≈ 14 nm lang; ganzes Protein 68 kDa
Lektin-Chaperon der ER-Membran für die Qualitätskontrolle von Glykoproteinen.
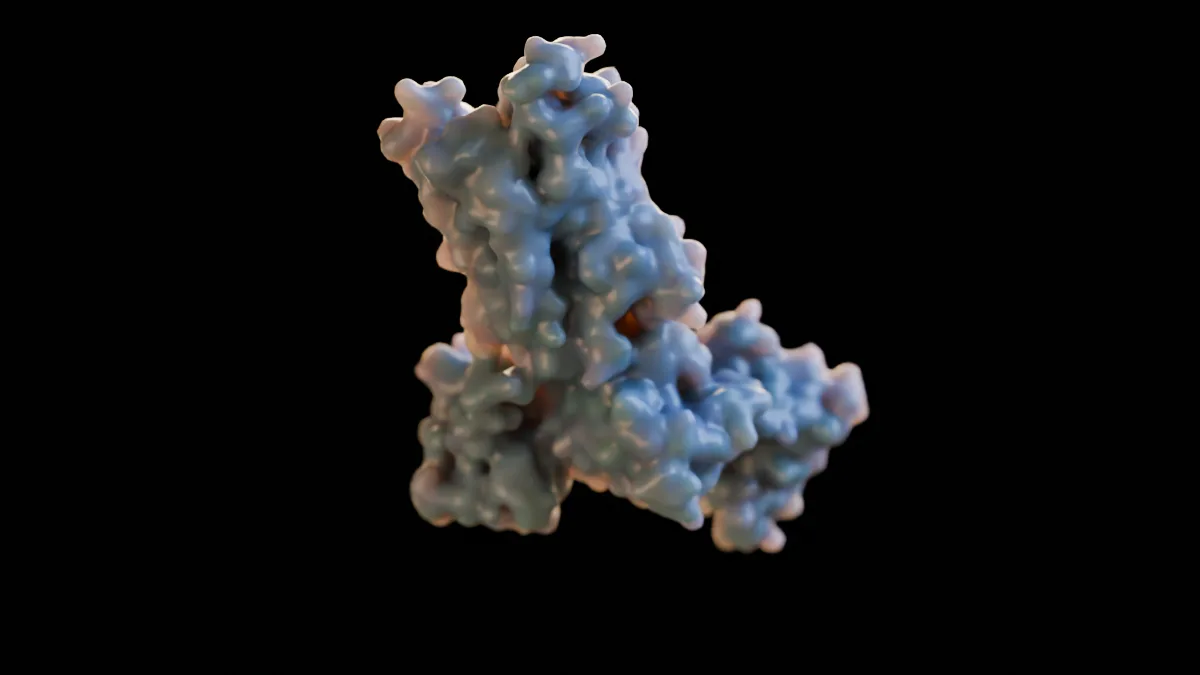
SERCA (Ca²⁺-ATPase des ER)
≈ 12 nm hoch, 110 kDa
Pumpt Calcium aus dem Zytosol ins ER und hält das Zytosol calciumarm.
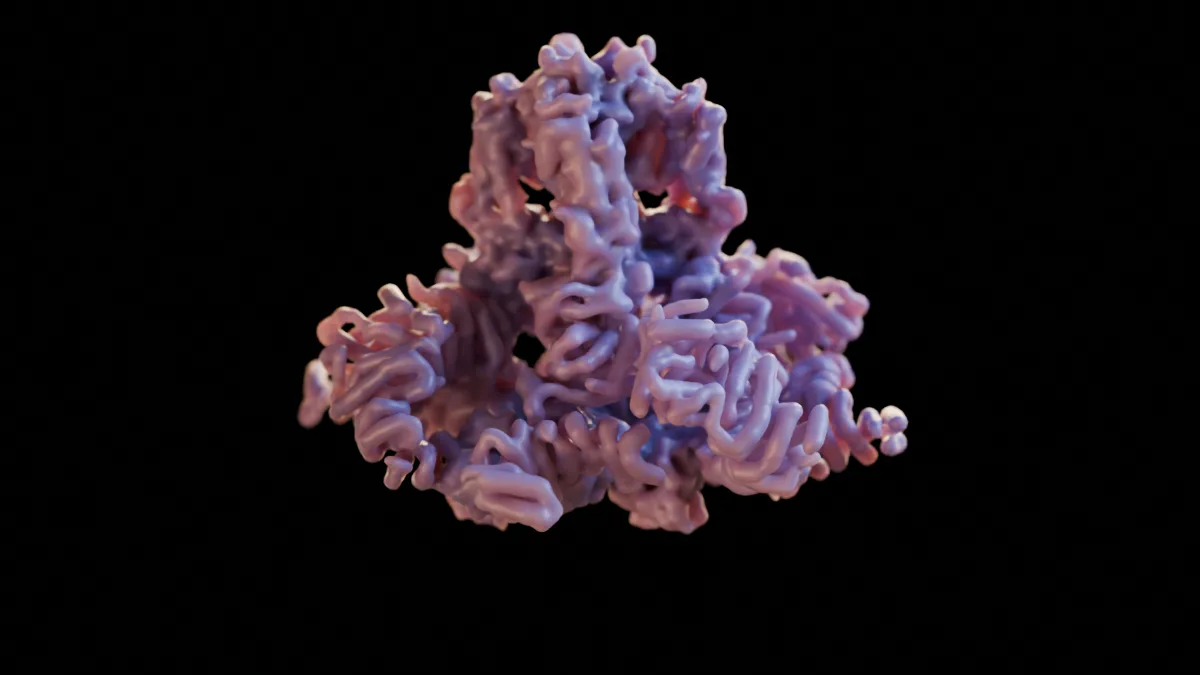
IP₃-Rezeptor (Tetramer)
≈ 23 nm breit, 4 × 313 kDa ≈ 1,3 MDa
Calciumkanal des ER, der sich auf den Botenstoff IP₃ hin öffnet.
Golgi-Apparat und Vesikel
Sortieren, Verpacken und Versenden
Bauteile
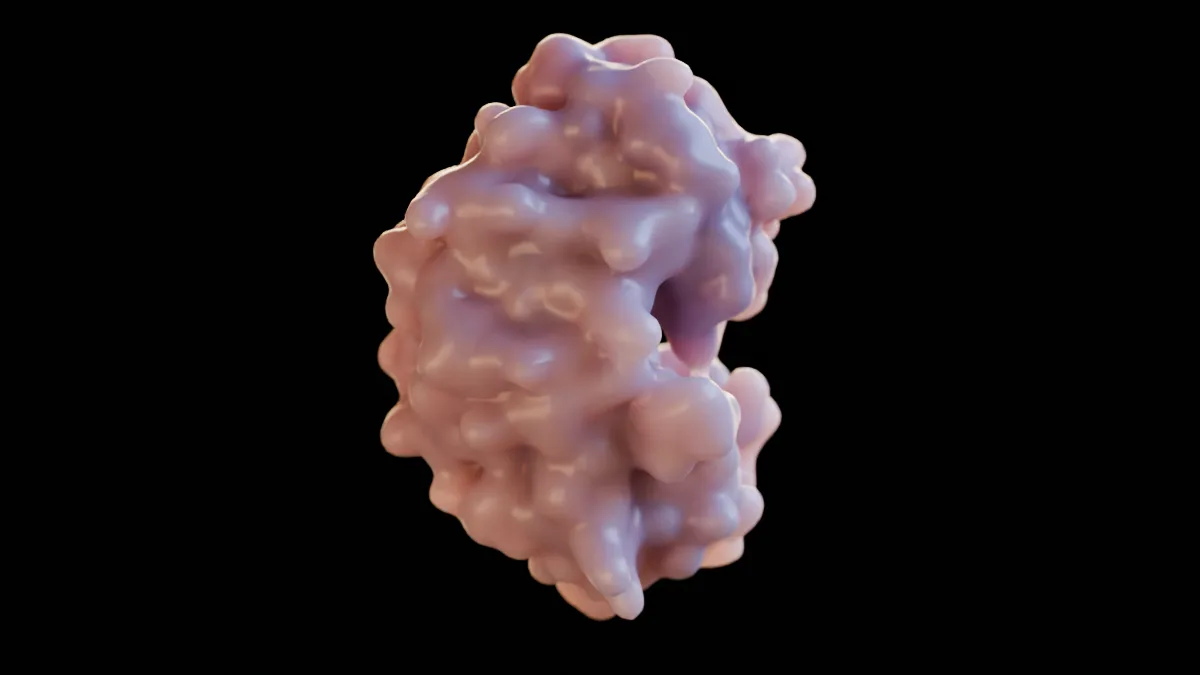
Fracht im Golgi-Lumen
führt zu: Cathepsin D
Lösliche Glykoproteine auf dem Weg durch die Zisternen – gezeigt sind die lysosomalen Enzyme Cathepsin D und β-Hexosaminidase A.
Entwichenes ER-Protein (KDEL-Rückholung)
führt zu: Protein-Disulfid-Isomerase (PDI)
Faltungshelfer des ER (PDI, BiP), die mit der Fracht in die cis-Zisternen geraten sind und von dort zurückgeholt werden.
Moleküle
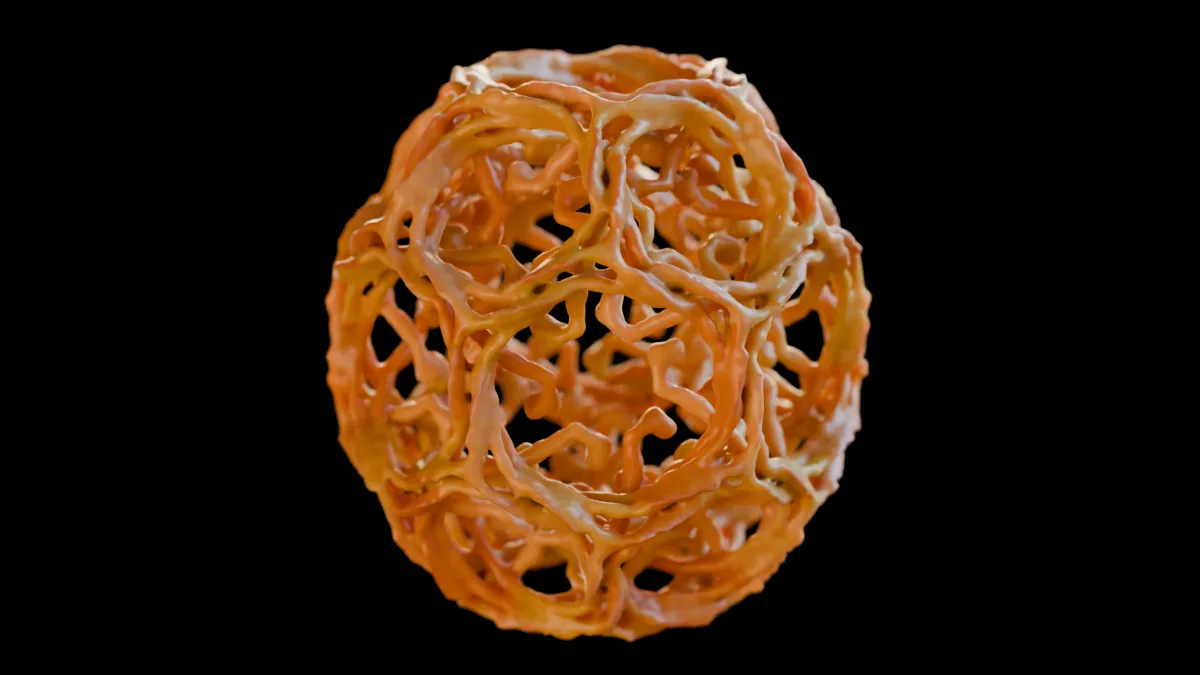
Clathrin-Käfig
≈ 70 nm
Geflecht aus Dreibeinen (Triskelien), das Membranstücke bei der Endozytose zu Vesikeln formt.
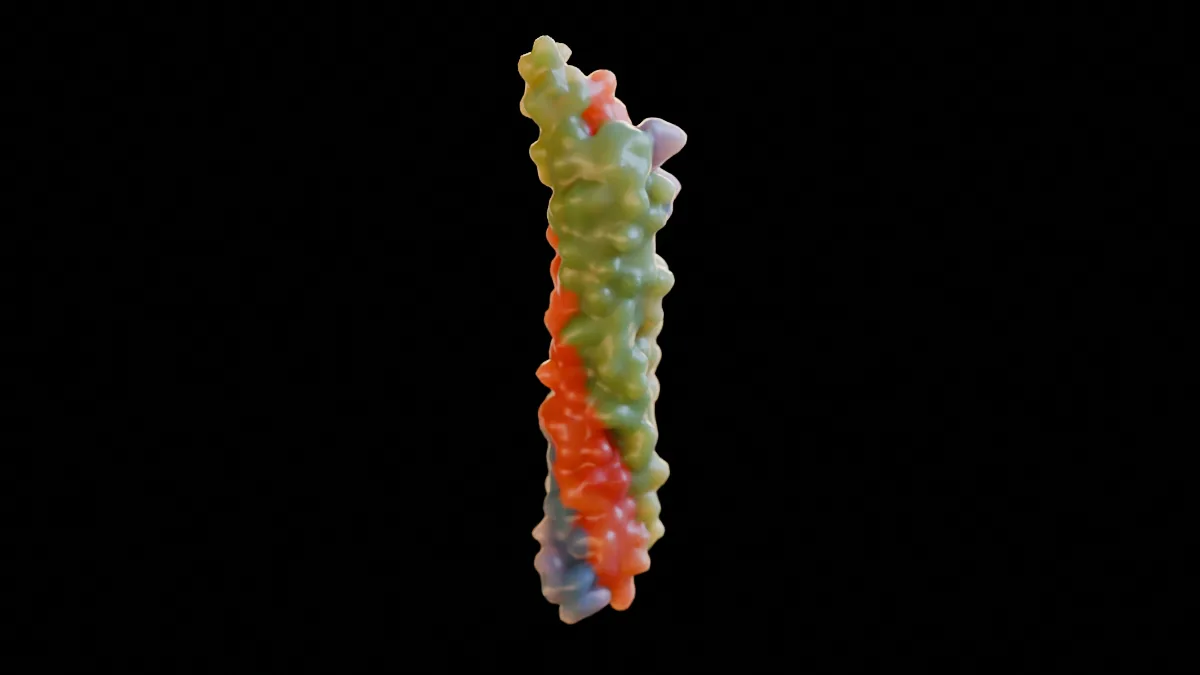
SNARE-Komplex
≈ 12 nm langes Bündel aus 4 Helices
Vierfach-Helix, die Vesikel und Zielmembran zusammenzieht, bis sie verschmelzen.
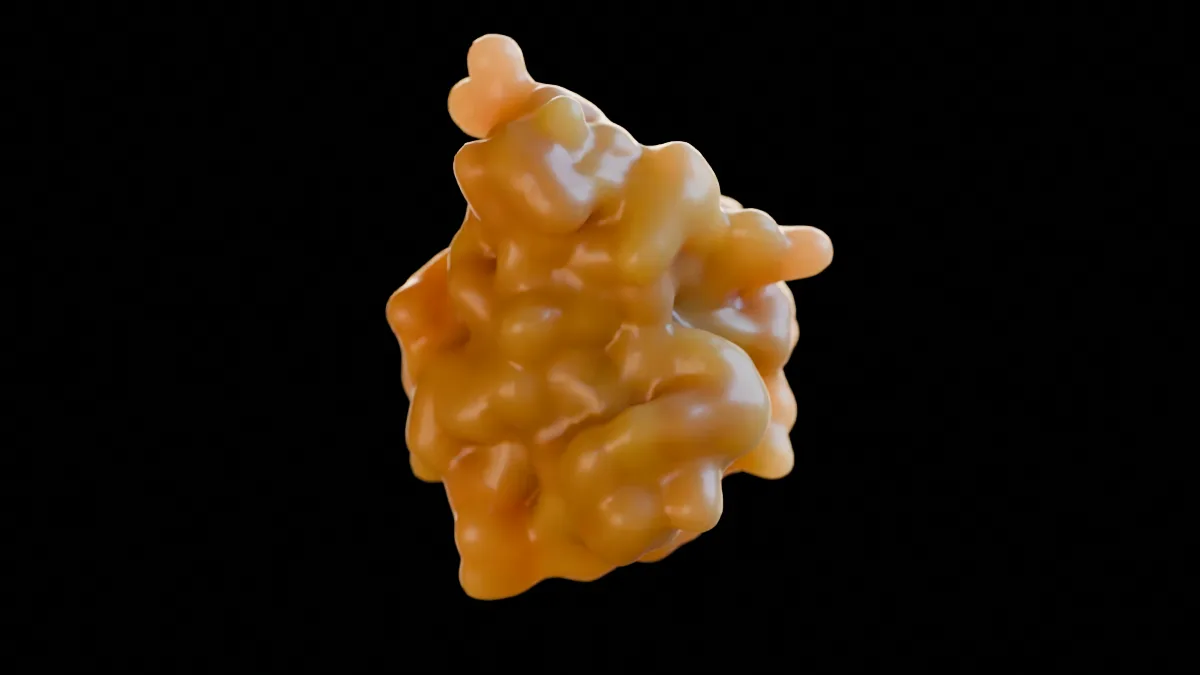
Rab-GTPase (Rab1a mit GTP)
≈ 5 nm, 23 kDa
Molekularer Schalter und Adressetikett der Membranen im Vesikelverkehr.
Mitochondrium
das Kraftwerk mit eigener DNA
Bauteile
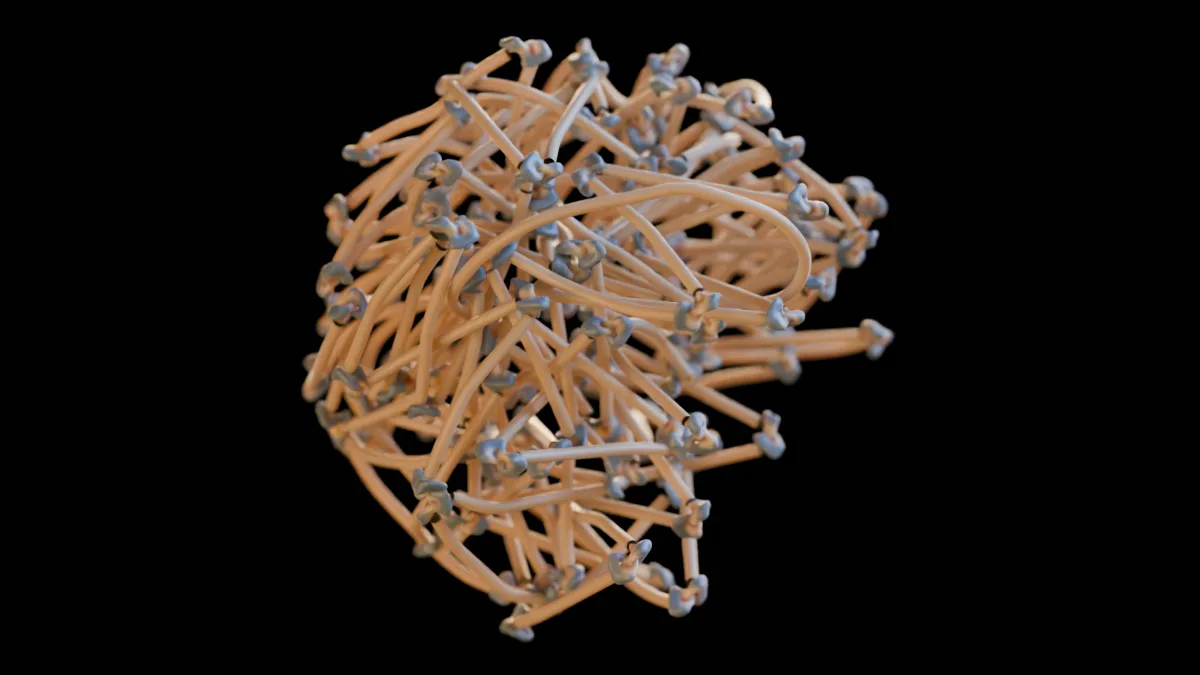
Moleküle
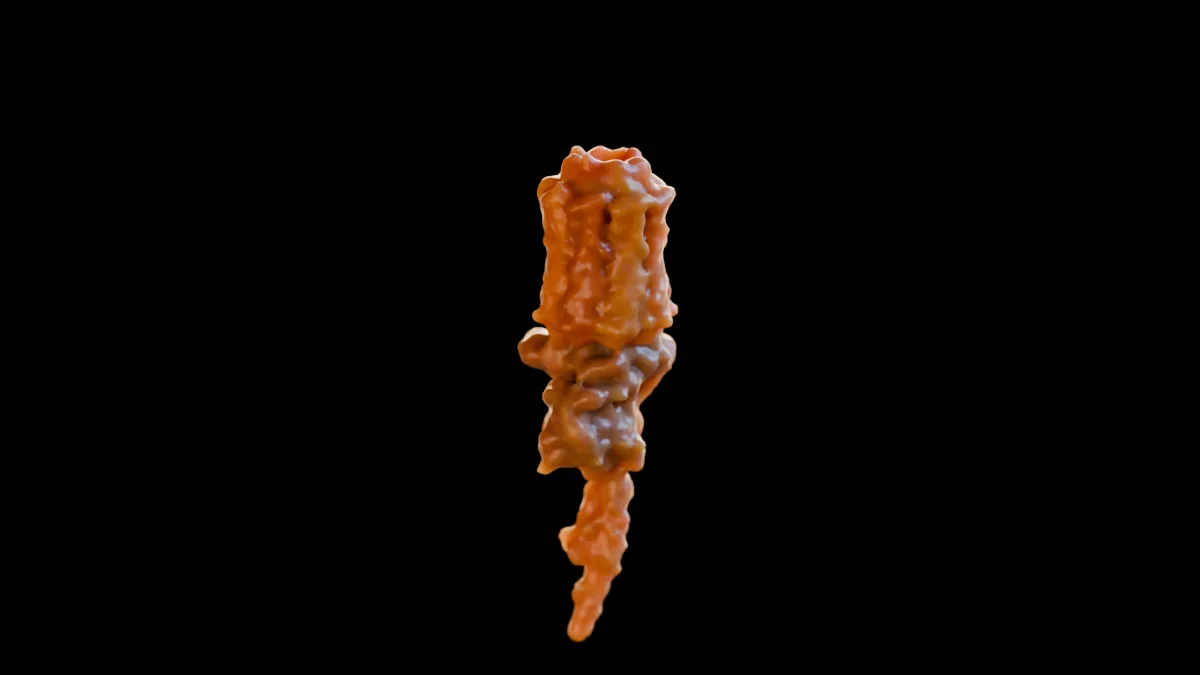
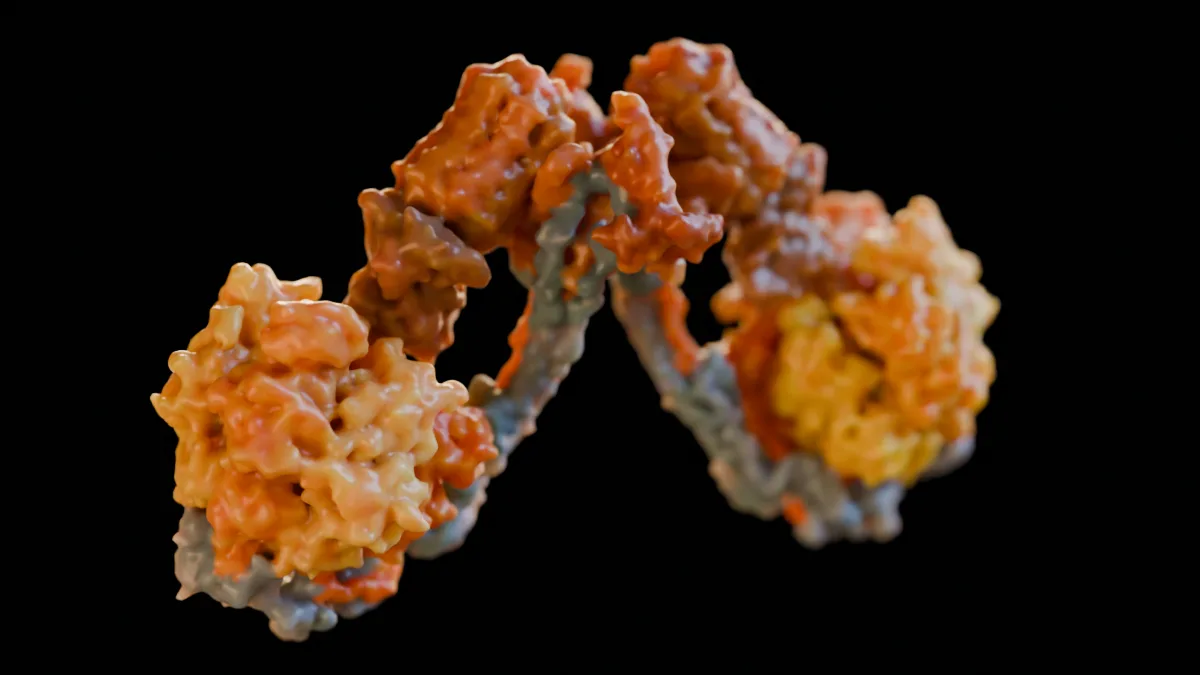
ATP-Synthase: Rotor (c-Ring, γ, δ, ε)
c-Ring ≈ 6 nm Durchmesser, mit Zentralstiel ≈ 18 nm lang, 109 kDa
Der drehende Teil der ATP-Synthase: ein Ring aus acht c-Untereinheiten in der Membran und der zentrale Stiel, der in den F₁-Kopf ragt.
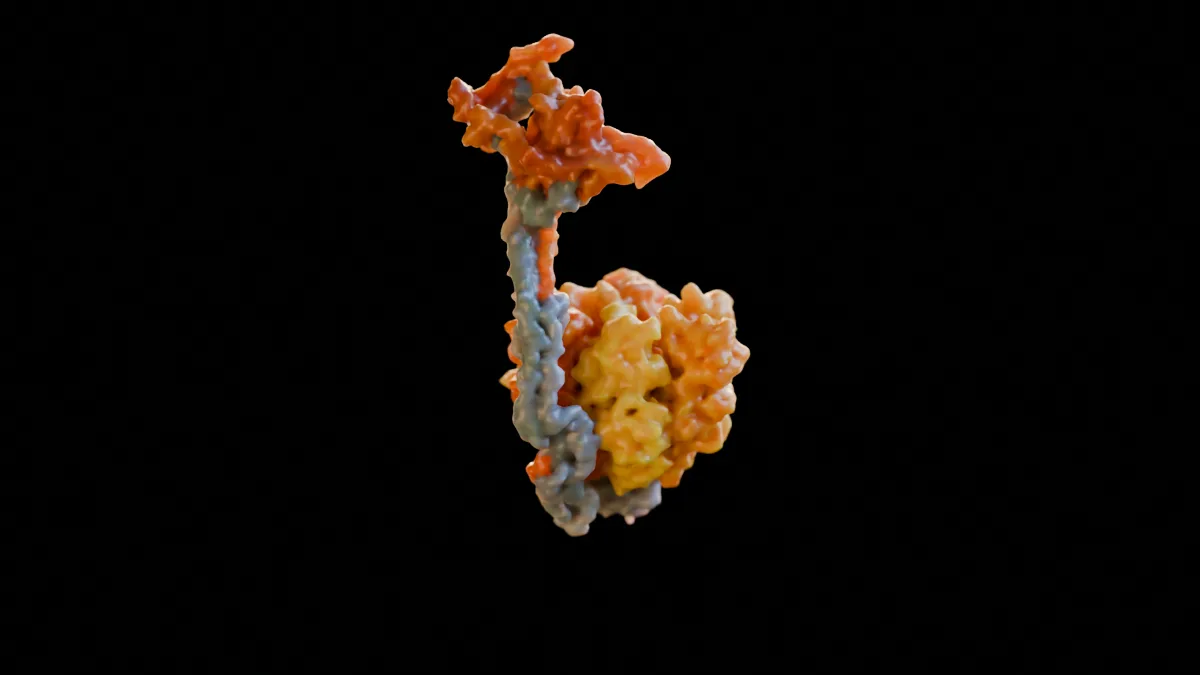
ATP-Synthase: Stator (α₃β₃, a, peripherer Stiel)
≈ 24 nm hoch, F₁-Kopf ≈ 10 nm, 433 kDa
Der feststehende Teil der ATP-Synthase: der F₁-Kopf aus drei α- und drei β-Untereinheiten, Untereinheit a in der Membran und der seitliche Stiel, der beide verbindet.
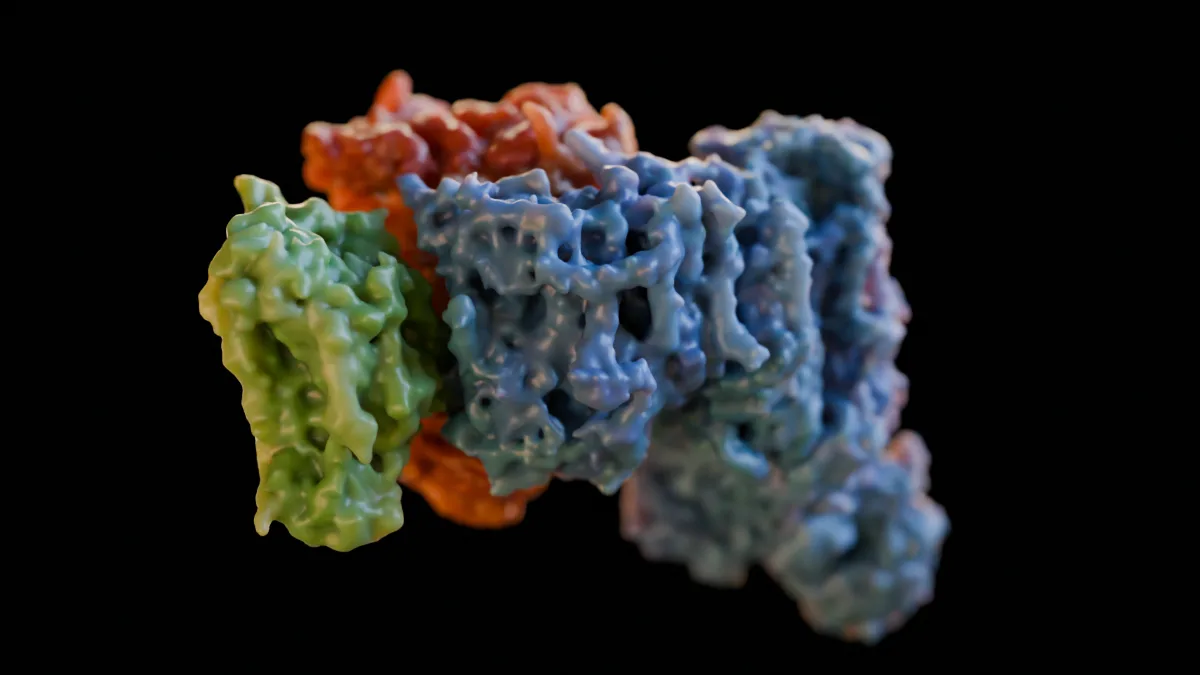
Atmungsketten-Superkomplex
≈ 30 nm, Komplexe I + III₂ + IV
Überträgt Elektronen von NADH auf Sauerstoff und pumpt dabei Protonen aus der Matrix. Der lange Arm von Komplex I ragt in die Matrix.
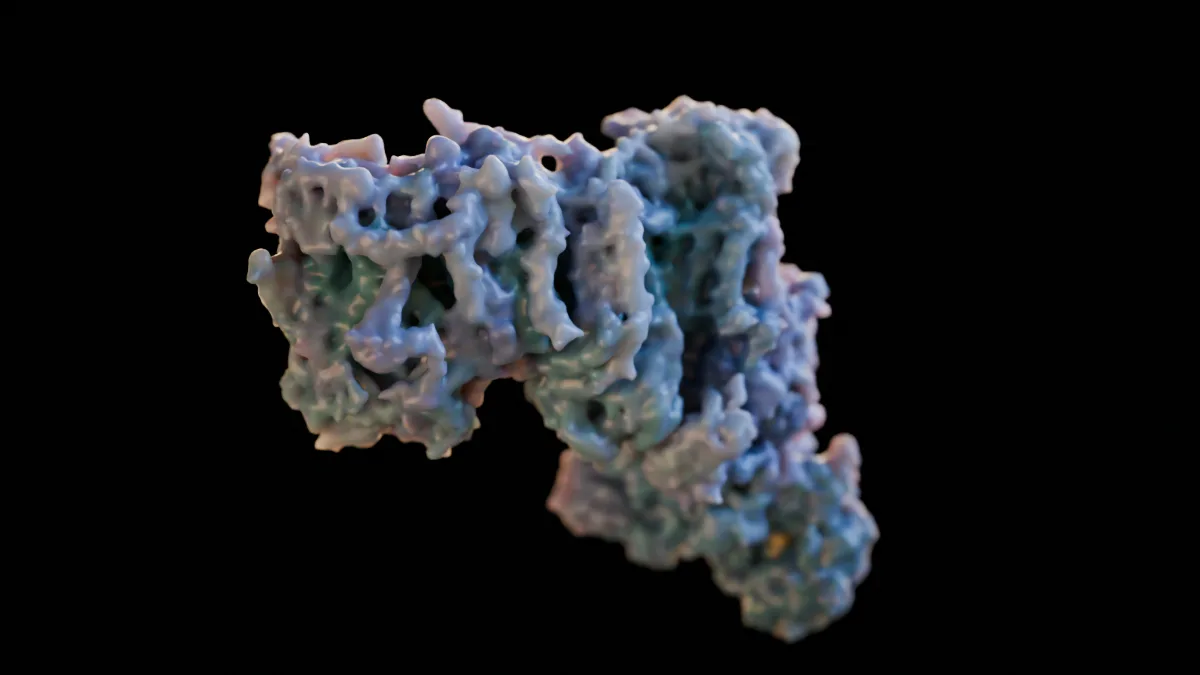
Komplex I (NADH-Dehydrogenase)
L-förmig, ≈ 22 × 26 nm, 45 Untereinheiten, ≈ 1 MDa
Eintrittspforte der Atmungskette: überträgt zwei Elektronen von NADH auf Ubichinon und pumpt dabei vier Protonen.
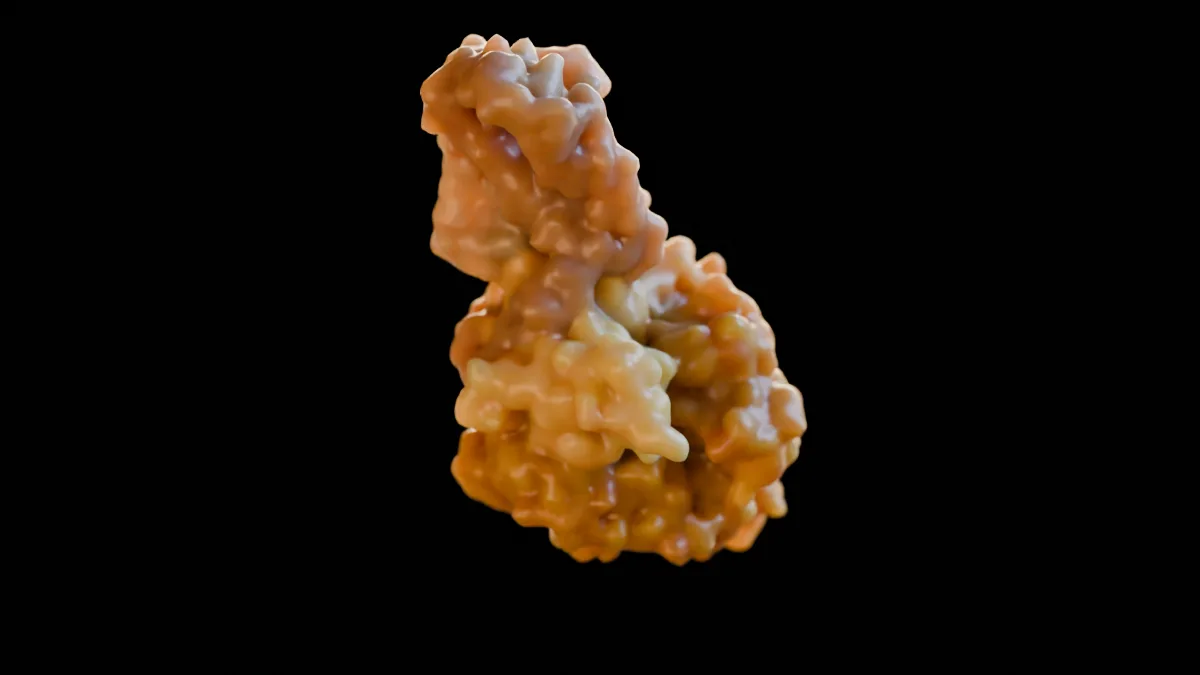
Komplex II (Succinat-Dehydrogenase)
≈ 12 nm hoch, 4 Untereinheiten, 123 kDa
Enzym des Citratzyklus und der Atmungskette zugleich: oxidiert Succinat zu Fumarat und reduziert Ubichinon.
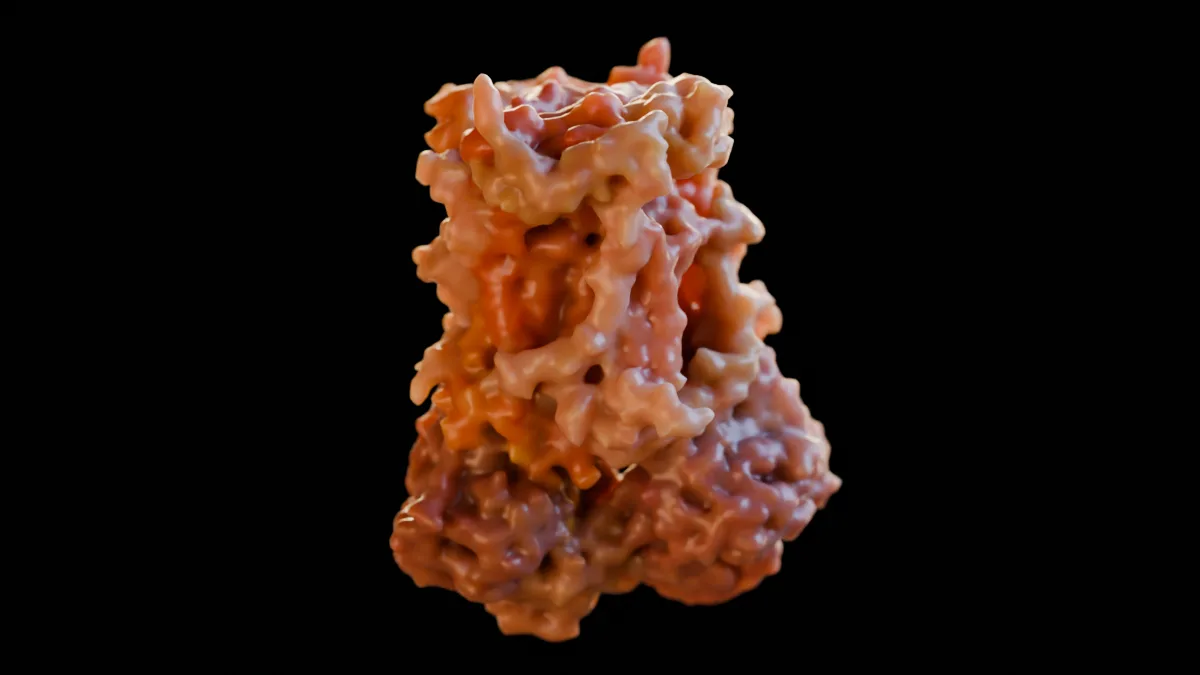
Komplex III (Cytochrom-bc₁-Komplex)
Dimer, ≈ 15 nm hoch, 2 × 11 Untereinheiten, ≈ 480 kDa
Überträgt Elektronen von Ubichinol auf Cytochrom c und verschiebt dabei Protonen über den Q-Zyklus.
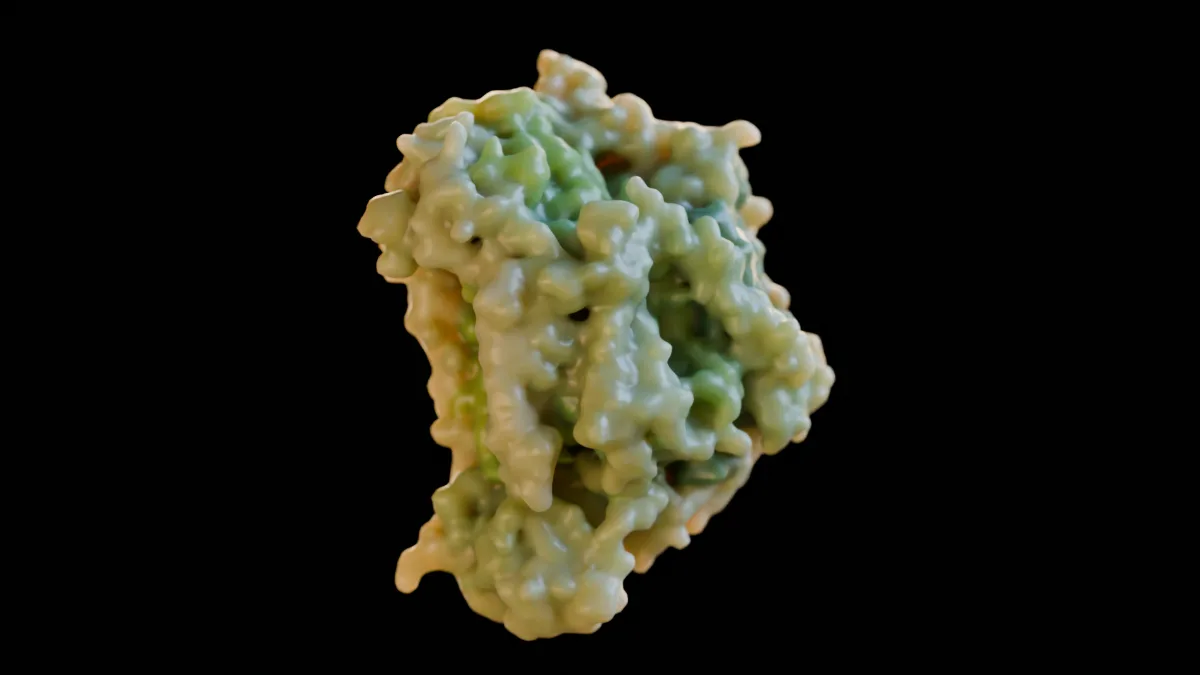
Komplex IV (Cytochrom-c-Oxidase)
≈ 12 nm hoch, 14 Untereinheiten, ≈ 200 kDa
Letzter Schritt der Atmungskette: überträgt Elektronen von Cytochrom c auf Sauerstoff – es entsteht Wasser.
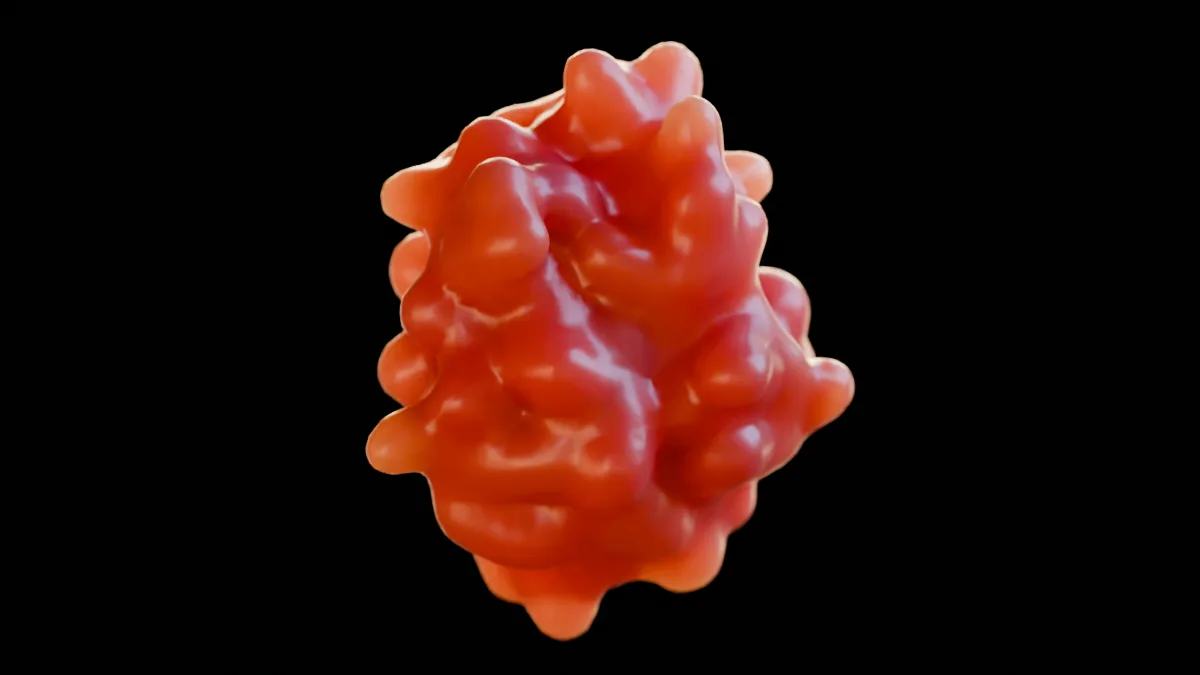
Cytochrom c
≈ 3,5 nm, 12 kDa
Kleiner Elektronenträger mit Häm-Gruppe im Intermembranraum; pendelt zwischen Komplex III und IV. Sein Austritt ins Zytosol löst die Apoptose aus.
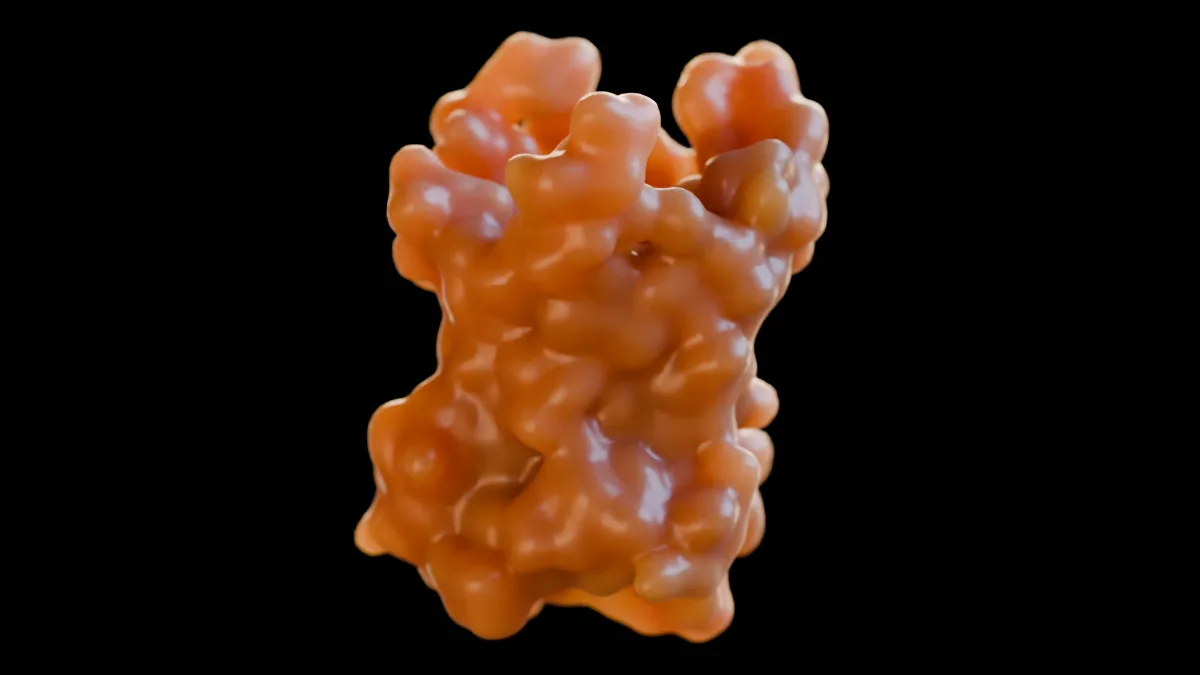
ADP/ATP-Carrier (ANT)
≈ 6 nm, 32 kDa, sechs Transmembranhelices
Tauscht ATP aus der Matrix gegen ADP aus dem Intermembranraum – das häufigste Protein der inneren Membran.
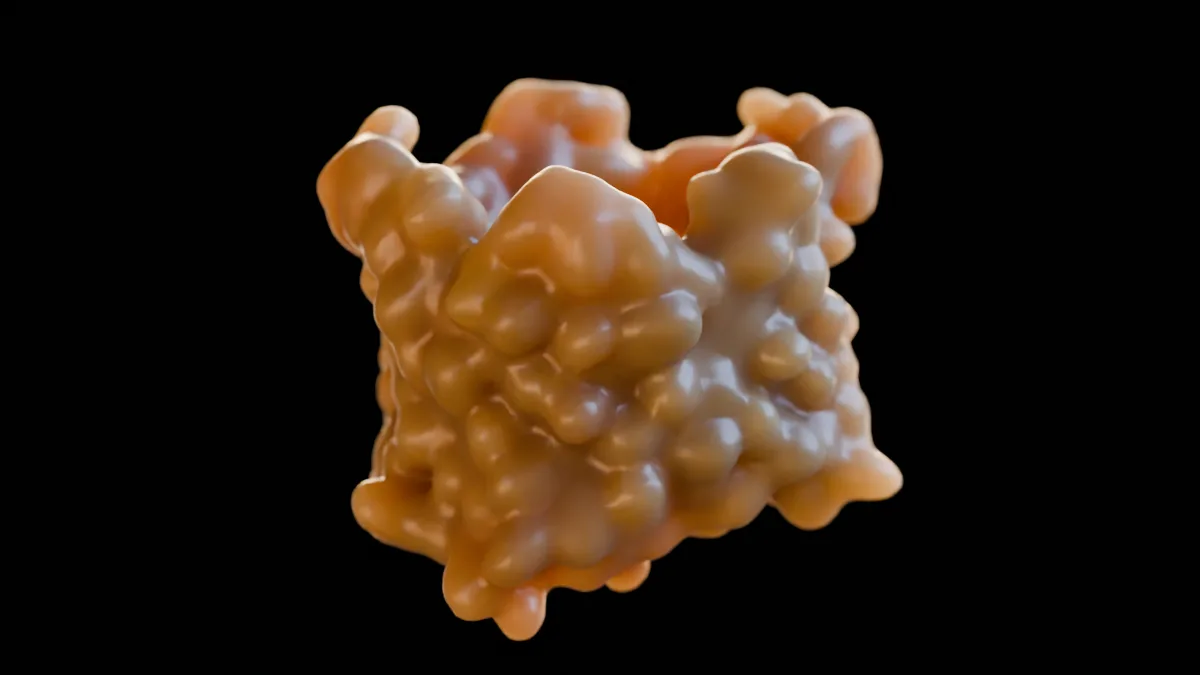
VDAC (Porin)
≈ 5 nm Fass aus 19 β-Strängen
Häufigstes Protein der äußeren Mitochondrienmembran; lässt ATP, ADP und Metabolite passieren.
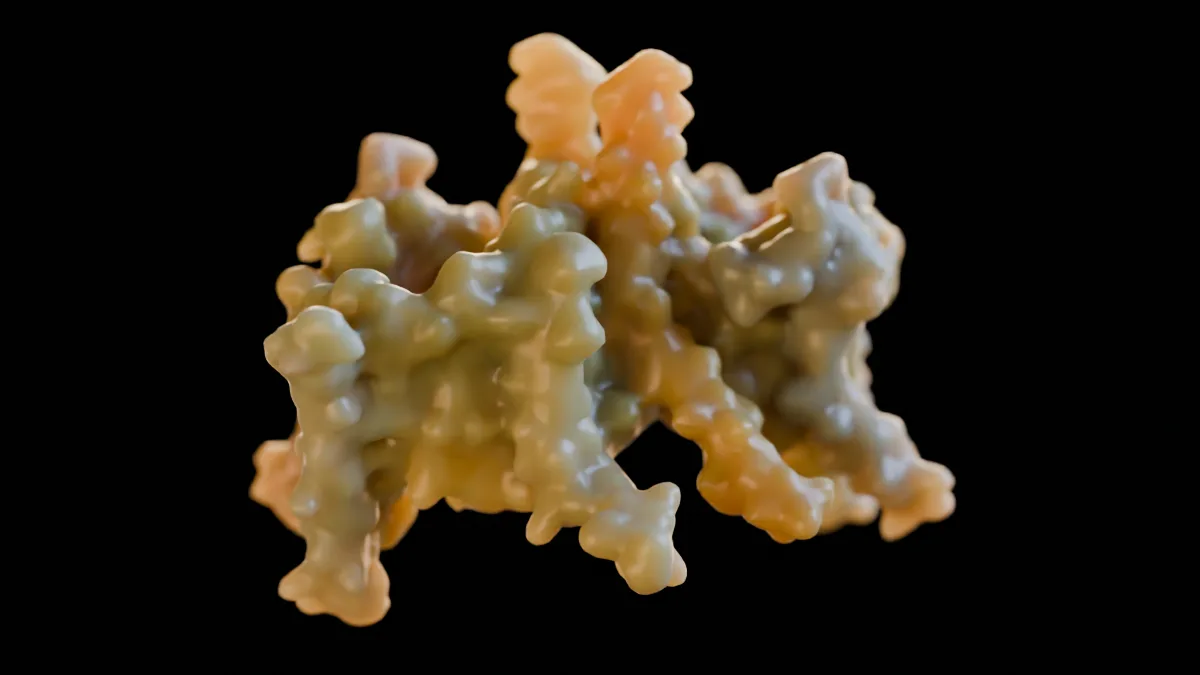
TOM-Komplex (Translokase der äußeren Membran)
≈ 13 nm breit, zwei Poren von je ≈ 2 nm
Eingangstor für fast alle Proteine des Mitochondriums.
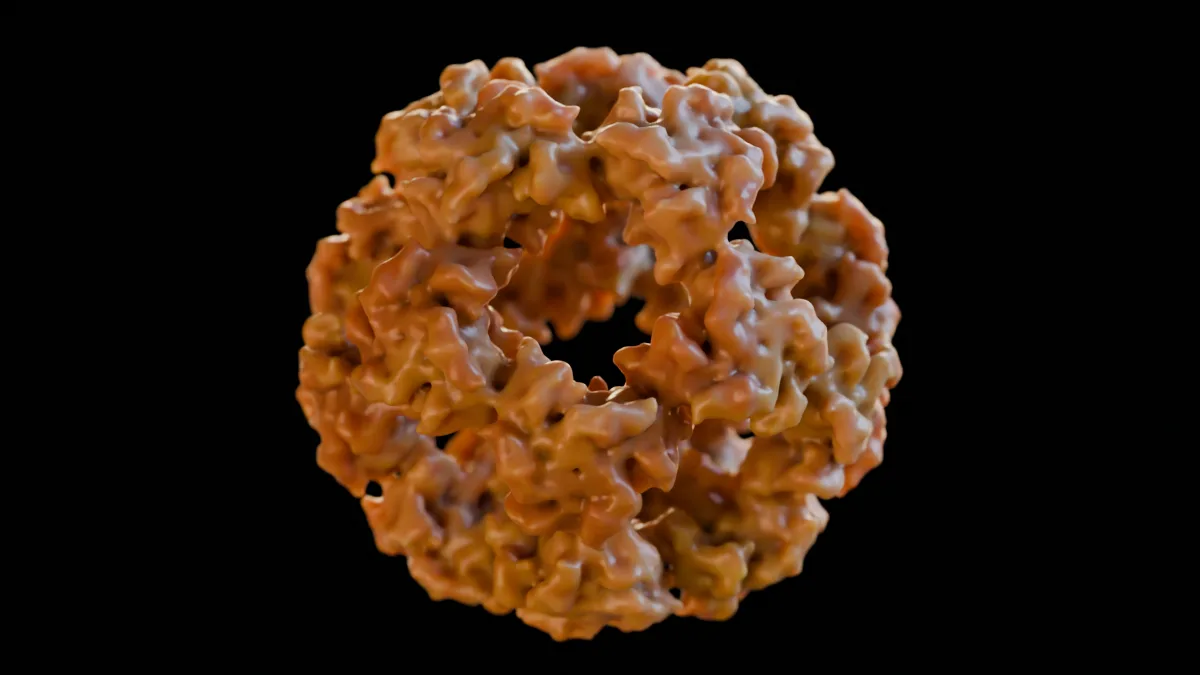
Pyruvat-Dehydrogenase: E2-Kern
≈ 24 nm, 60 Untereinheiten, 1,5 MDa (ganzer Komplex ≈ 45 nm, ≈ 9 MDa)
Gerüst des Pyruvat-Dehydrogenase-Komplexes, der Pyruvat in Acetyl-CoA umwandelt – die Verbindung von Glykolyse und Citratzyklus.
Citrat-Synthase
≈ 9 nm, Dimer, 97 kDa
Startet den Citratzyklus: verbindet Acetyl-CoA mit Oxalacetat zu Citrat.
Aconitase
≈ 8 nm, 83 kDa
Lagert im Citratzyklus Citrat über cis-Aconitat zu Isocitrat um.
Malat-Dehydrogenase (mitochondrial, MDH2)
≈ 8,5 nm, Dimer, 66 kDa
Letzter Schritt des Citratzyklus: oxidiert Malat zu Oxalacetat, dabei entsteht NADH.
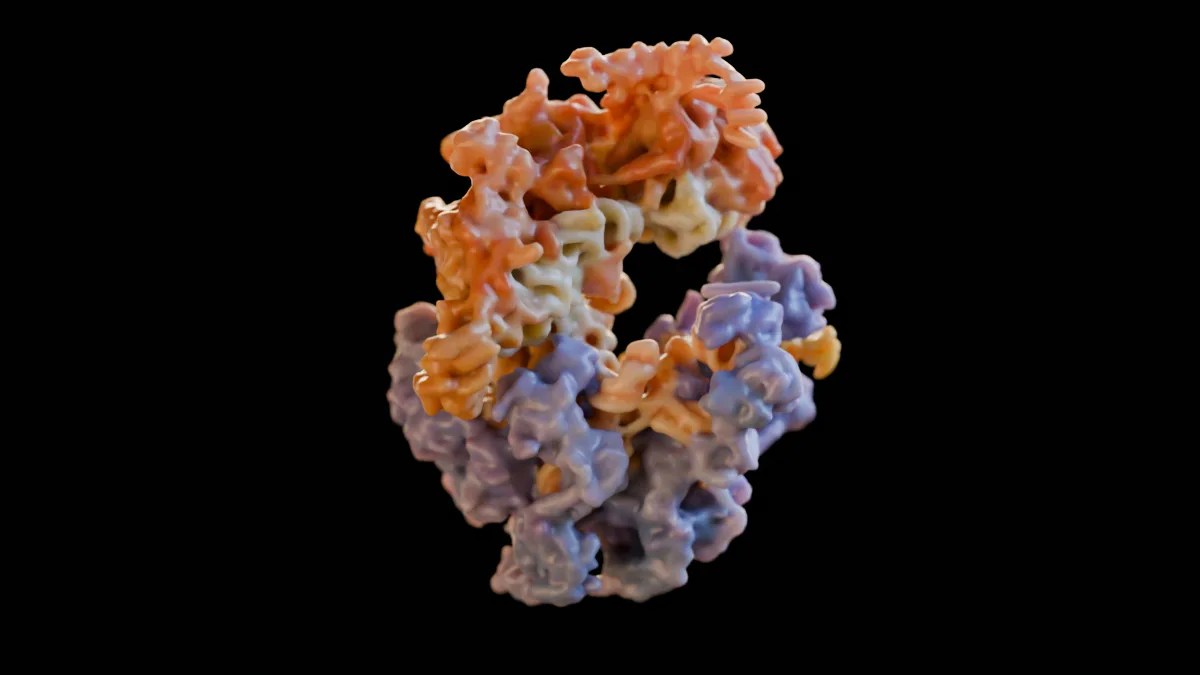
Mitochondriales Ribosom (55S)
≈ 30 nm, ≈ 2,7 MDa, rund 80 Proteine
Stellt die 13 Proteine her, die in der mitochondrialen DNA kodiert sind.
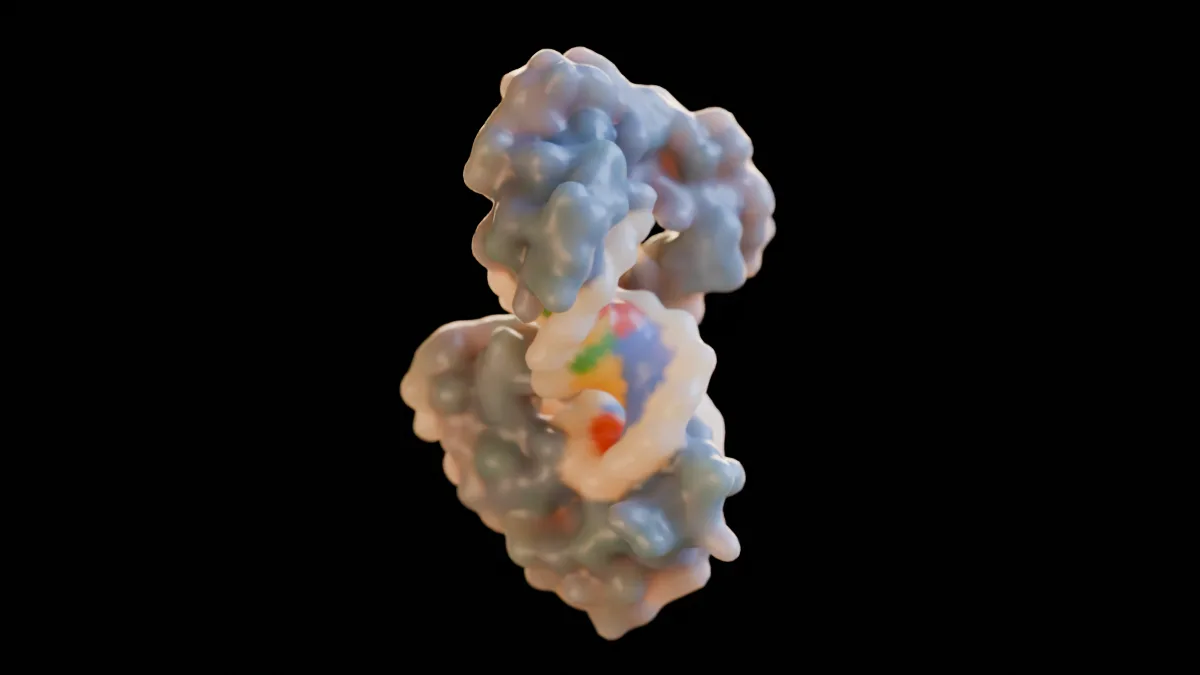
TFAM an mitochondrialer DNA
≈ 8,6 nm; Protein 25 kDa mit 22 Basenpaaren DNA
Verpackt die mitochondriale DNA und startet ihre Transkription.
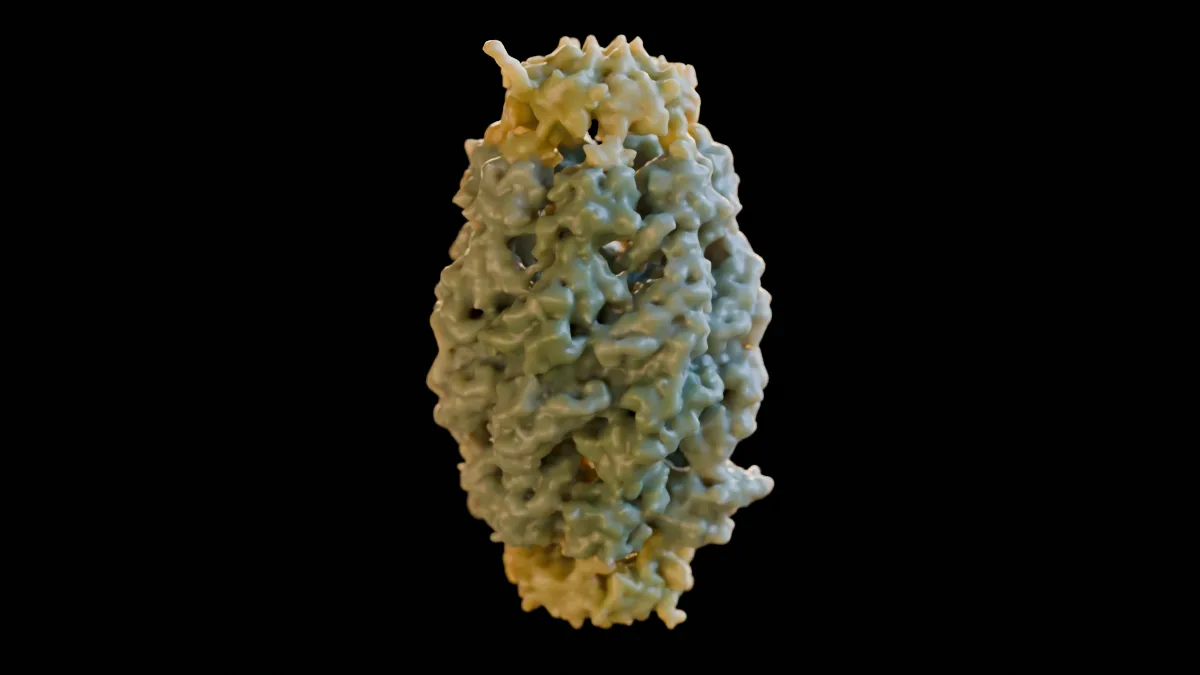
Hsp60/Hsp10 (Chaperonin)
≈ 15 × 26 nm, 14 + 14 Untereinheiten, ≈ 930 kDa
Faltungskammer der Matrix: schließt neu importierte Proteine ein, bis sie ihre Form gefunden haben.
Abbau und Entgiftung
Lysosomen und Peroxisomen
Moleküle
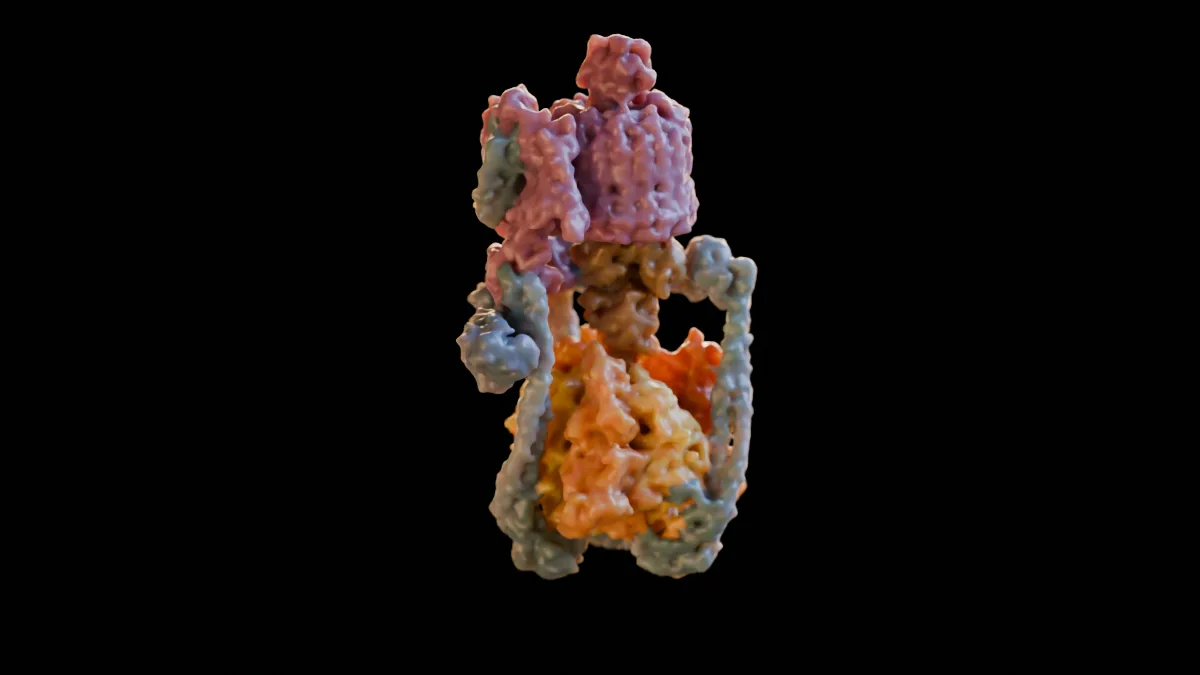
V-ATPase
≈ 28 nm hoch, ≈ 900 kDa
Rotierende Protonenpumpe, die Lysosomen, Endosomen und Vesikel ansäuert.
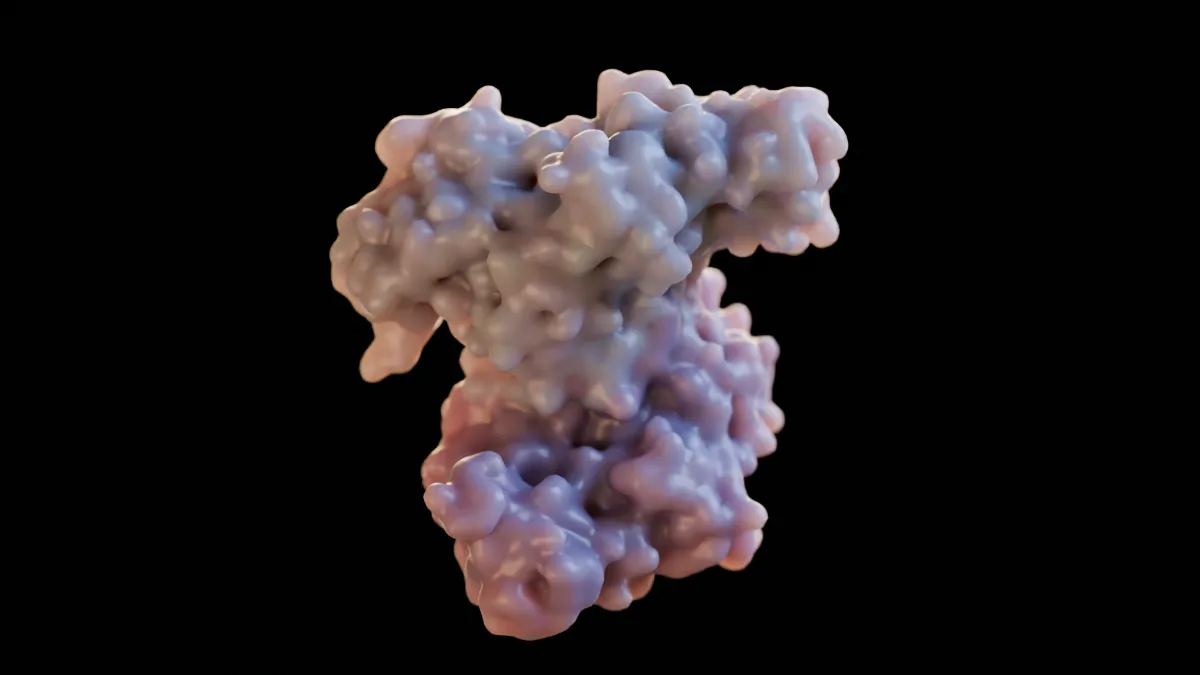
β-Hexosaminidase A (lysosomal)
≈ 9 nm, αβ-Dimer ≈ 110 kDa
Lysosomales Enzym für den Abbau des Gangliosids GM2.
Cathepsin D
≈ 6,5 nm, ≈ 42 kDa
Aspartatprotease der Lysosomen.
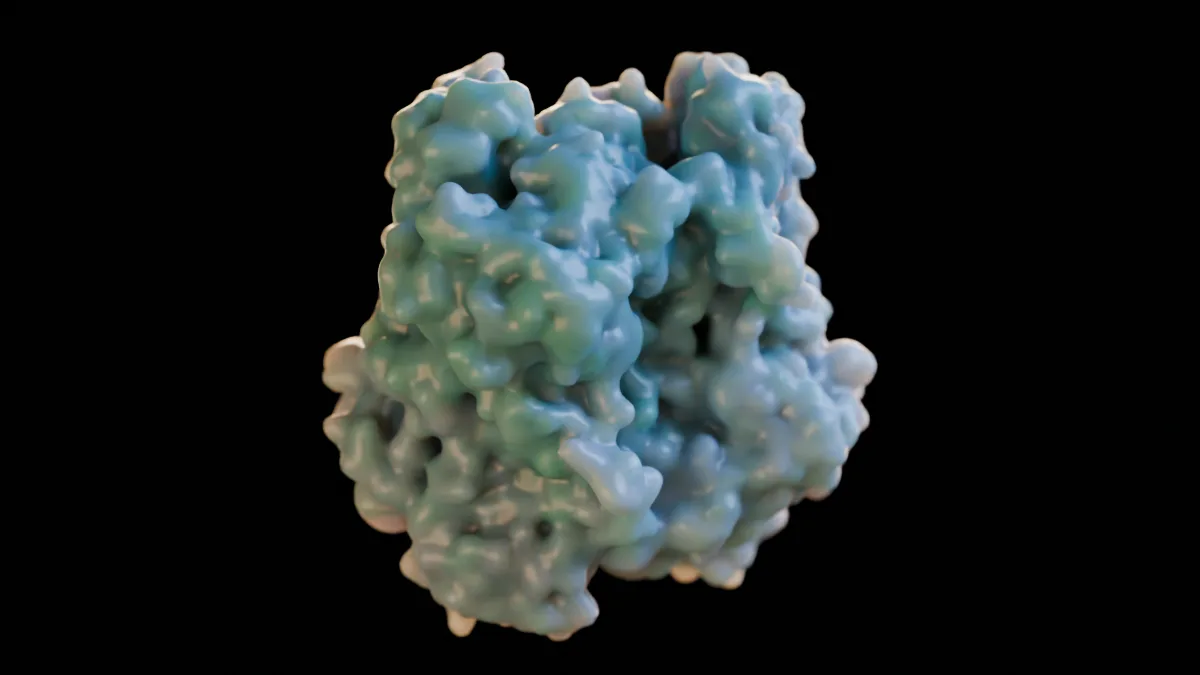
Katalase
≈ 10 nm, Tetramer 240 kDa
Zerlegt Wasserstoffperoxid in Wasser und Sauerstoff. Leitenzym der Peroxisomen.